Générateur de schéma de la réplication de l'ADN
Des schémas annotés de la réplication de l'ADN : fourche de réplication avec hélicase, primase, polymérase et ligase, brins précoce et tardif avec fragments d'Okazaki, œil de réplication et télomérase. Adapté aux cours de biologie.
Réplication de l'ADN : schémas d'exemple
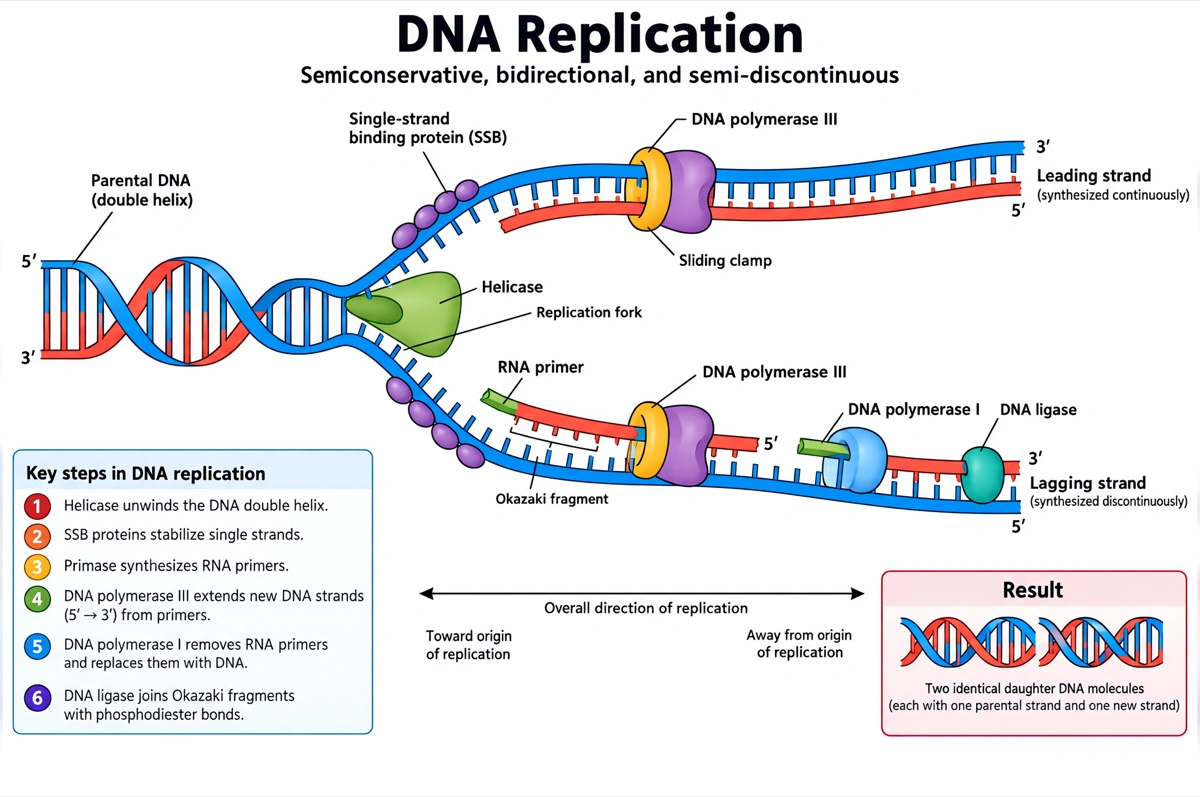
Quatre schémas de la réplication de l'ADN : la fourche annotée, une vue d'ensemble, brins précoce et tardif, et une fiche vierge. Chaque image est un rendu réel de son prompt ; cliquez pour le charger et le modifier.
Les enzymes de la réplication de l'ADN et leur rôle, sur un schéma annoté
Les protéines qu'un schéma annoté de la réplication montre habituellement, leur rôle et leur place sur la fourche. C'est le jeu d'annotations par défaut, sauf si vous en demandez moins.
| Enzyme ou protéine | Rôle | Où la dessiner |
|---|---|---|
| Hélicase | Déroule la double hélice en rompant les liaisons hydrogène entre paires de bases, grâce à l'ATP | À la pointe de la fourche, là où l'hélice parentale s'ouvre |
| Protéines SSB (liaison à l'ADN simple brin) | Recouvrent les brins séparés pour qu'ils ne se réapparient pas | Le long des deux brins simples exposés |
| Topoisomérase | Supprime le surenroulement en avant de la fourche en coupant puis en ressoudant l'ADN | Sur la double hélice encore fermée, devant la fourche |
| Primase | Synthétise de courtes amorces d'ARN, point de départ de l'ADN polymérase | Sur les matrices, une amorce par fragment d'Okazaki côté brin tardif |
| ADN polymérase III | Principale enzyme de réplication des bactéries : ajoute les nucléotides dans le sens 5′→3′ | Sur les deux nouveaux brins, à partir des amorces |
| Collier coulissant | Anneau qui maintient l'ADN polymérase sur l'ADN pendant qu'elle avance | Autour de l'ADN, au niveau de chaque polymérase |
| ADN polymérase I | Élimine les amorces d'ARN et comble les brèches avec de l'ADN | Sur le brin tardif, aux amorces des fragments terminés |
| ADN ligase | Referme les coupures en formant des liaisons phosphodiester | Entre deux fragments d'Okazaki voisins |
Le nombre d'annotations attendu dépend du niveau. Une première approche se limite souvent à l'hélicase, l'ADN polymérase et la ligase ; en spécialité SVT et pour le baccalauréat, on ajoute la primase, le collier coulissant et la différence entre ADN polymérase I et III. Indiquez les annotations voulues : seules celles-ci sont dessinées.
Fourche, œil de réplication, fragments d'Okazaki : les schémas de la réplication de l'ADN
La réplication de l'ADN se dessine à trois échelles (une molécule entière qui se copie, un œil de réplication ou les enzymes d'une seule fourche), et quelques figures zooment encore sur une seule enzyme. Dites ce qu'il vous faut ; par défaut, c'est la fourche complète ci-dessus.
Schéma de la fourche de réplication
Le Y où l'hélice parentale se sépare : l'hélicase à la pointe, les protéines SSB sur les brins ouverts, la topoisomérase sur l'hélice encore fermée en avant, le brin précoce qui s'allonge en continu vers la fourche et le brin tardif, en fragments d'Okazaki, qui s'allonge en s'en éloignant. Chaque extrémité de brin doit porter 5′ ou 3′ ; vérifiez avant tout que les deux brins matrices sont antiparallèles.
Œil de réplication
L'origine de réplication ouverte en œil (ou bulle), avec une fourche à chaque extrémité, les deux s'éloignant l'une de l'autre : la réplication est bidirectionnelle. Chaque brin matrice est copié en brin précoce à une fourche et en brin tardif à l'autre, si bien que les fragments d'Okazaki se trouvent sur des brins différents des deux côtés de l'œil. Les dessiner sur le même brin aux deux fourches est l'erreur classique.
Brin précoce et brin tardif (fragments d'Okazaki)
Un gros plan sur les deux nouveaux brins : un brin précoce continu issu d'une seule amorce, et un brin tardif fait de fragments (environ 1 000 à 2 000 nucléotides chacun chez les bactéries, 100 à 200 chez les eucaryotes), chacun commencé par sa propre amorce d'ARN. Montrez le fragment le plus récent, près de la fourche, encore porteur de son amorce, un plus ancien dont l'amorce est remplacée par l'ADN polymérase I, et l'ADN ligase qui referme la dernière coupure.
Étapes de la réplication de l'ADN
Le processus en étapes numérotées, sur la fourche ou en organigramme : l'hélicase ouvre l'hélice à l'origine, les protéines SSB maintiennent les brins séparés et la topoisomérase relâche la torsion en avant, la primase dépose des amorces d'ARN, l'ADN polymérase III les allonge dans le sens 5′→3′, l'ADN polymérase I remplace les amorces par de l'ADN, et l'ADN ligase relie les fragments.
ADN polymérase
Une polymérase à la jonction amorce–matrice : un nucléotide entrant s'apparie à la base suivante de la matrice et se lie à l'extrémité 3′-OH libre du nouveau brin, avec libération de pyrophosphate. Ajoutez le site exonucléase 3′→5′ si le cours aborde la relecture : la polymérase recule et retire une base mal appariée avant de continuer.
Hélicase
L'hélicase en anneau de six sous-unités autour d'un brin, qui utilise l'ATP pour écarter les deux brins à la fourche, avec derrière elle les protéines SSB qui recouvrent les brins et devant elle la topoisomérase qui relâche le surenroulement.
Télomérase
Le problème de la réplication des extrémités et sa solution. Quand la dernière amorce d'ARN à l'extrémité d'un chromosome linéaire est retirée, rien ne peut combler le vide, si bien que chaque cycle raccourcirait le chromosome. La télomérase porte sa propre matrice d'ARN et ajoute des répétitions TTAGGG à l'extrémité 3′ du brin qui dépasse. Elle est active dans les cellules germinales et les cellules souches adultes, pas dans la plupart des cellules somatiques de l'adulte.
Réplication chez les procaryotes et les eucaryotes
Côte à côte : un chromosome bactérien circulaire copié à partir d'une seule origine, ses deux fourches se rejoignant du côté opposé ; un chromosome eucaryote linéaire avec de nombreuses origines dont les yeux grandissent jusqu'à fusionner. Légendez les différences : environ 1 000 nucléotides par seconde contre 50 à 100, l'ADN polymérase III contre les polymérases α, δ et ε, le collier coulissant β contre le PCNA, et la télomérase chez les eucaryotes seulement.
Dessin simple de la réplication de l'ADN
Une échelle qui s'ouvre par le milieu comme une fermeture éclair, chaque moitié s'appariant à de nouvelles bases, et deux molécules identiques à la fin. Dessiner les anciens brins d'une couleur et les nouveaux d'une autre rend le résultat semi-conservatif visible sans un mot d'explication. Cinq légendes au plus, pour une première leçon de génétique.
Que montre un schéma de la réplication de l'ADN ?
Un schéma de la réplication de l'ADN montre comment la cellule copie son ADN au niveau d'une fourche de réplication : l'hélicase sépare les deux brins, la primase dépose de courtes amorces d'ARN, l'ADN polymérase construit chaque nouveau brin dans le sens 5′→3′ (le brin précoce d'un seul tenant, le brin tardif en fragments d'Okazaki) et l'ADN ligase referme les coupures. Chaque molécule obtenue garde un ancien brin et un nouveau.
L'essentiel
- La réplication est semi-conservative. Chaque molécule fille conserve un brin parental et l'associe à un brin néosynthétisé : c'est ce qu'ont montré Meselson et Stahl en cultivant E. coli sur azote lourd, puis léger.
- Le nouvel ADN ne s'allonge que dans le sens 5′→3′. L'ADN polymérase n'ajoute des nucléotides qu'à une extrémité 3′-OH libre : chaque nouveau brin part donc d'une amorce et reste antiparallèle à sa matrice.
- Un nouveau brin est continu, l'autre fragmenté. Le brin précoce est synthétisé vers la fourche à partir d'une seule amorce ; le brin tardif est synthétisé en s'éloignant de la fourche, en courts fragments d'Okazaki portant chacun leur amorce d'ARN.
- Les amorces sont en ARN et sont remplacées. La primase fabrique des amorces d'ARN d'environ 5 à 10 nucléotides ; chez les bactéries, l'ADN polymérase I les remplace par de l'ADN et l'ADN ligase referme les coupures restantes.
- Une seule origine chez les bactéries, beaucoup chez les eucaryotes. E. coli copie son chromosome de 4,6 millions de paires de bases à partir d'une seule origine en 42 minutes environ ; le génome humain compte jusqu'à 100 000 origines.
Brin précoce et brin tardif : quelle différence ?
Le brin précoce est synthétisé en continu vers la fourche de réplication à partir d'une seule amorce ; le brin tardif est synthétisé en s'éloignant de la fourche, en courts fragments d'Okazaki amorcés chacun par leur propre amorce d'ARN, puis reliés par l'ADN ligase. Les deux s'allongent dans le sens 5′→3′ : la différence vient de l'orientation opposée des deux brins matrices.
| Brin précoce | Brin tardif | |
|---|---|---|
| Sens de synthèse | Vers la fourche de réplication | En s'éloignant de la fourche |
| Mode de synthèse | Continu, d'un seul tenant | Discontinu, en fragments d'Okazaki |
| Amorces d'ARN | Une seule, au départ | Une par fragment d'Okazaki |
| Matrice | Complémentaire du brin parental 3′→5′ | Complémentaire du brin parental 5′→3′ |
| Polymérase principale chez E. coli | ADN polymérase III | ADN polymérase III |
| Polymérase principale chez les eucaryotes | ADN polymérase ε | ADN polymérase δ |
| Après la synthèse | Sa seule amorce est remplacée par de l'ADN | Chaque amorce est remplacée et l'ADN ligase relie les fragments |
Dessinez le brin tardif comme une suite de courts segments dont les flèches s'éloignent de la fourche, le fragment le plus récent, près de la fourche, portant encore son amorce d'ARN. Un brin tardif dessiné d'une seule flèche, ou avec des flèches tournées vers la fourche, est la première erreur à vérifier.
Questions fréquentes sur le schéma de la réplication de l'ADN
Que doit contenir un schéma annoté de la réplication de l'ADN ?
Le jeu standard comprend l'ADN parental, la fourche de réplication, l'hélicase, les protéines SSB, la topoisomérase, la primase et ses amorces d'ARN, l'ADN polymérase III, le brin précoce, le brin tardif et ses fragments d'Okazaki, l'ADN polymérase I et l'ADN ligase, avec les extrémités 5′ et 3′ marquées. C'est le choix par défaut ; demandez moins d'annotations et seules celles-ci sont dessinées.
Qu'est-ce qu'un œil de réplication ?
La portion d'ADN ouverte autour d'une origine de réplication, avec une fourche de réplication à chaque extrémité, les deux s'éloignant l'une de l'autre. Comme la réplication part de l'origine dans les deux sens, l'œil (ou bulle de réplication) s'agrandit jusqu'à rejoindre ses voisins. Un chromosome eucaryote forme de nombreux yeux de réplication à la fois ; le chromosome circulaire d'E. coli n'a qu'une seule origine, et ses deux fourches se rejoignent du côté opposé du cercle.
Pourquoi le brin tardif est-il synthétisé en fragments d'Okazaki ?
Parce que l'ADN polymérase ne synthétise que dans le sens 5′→3′ et que les deux brins matrices sont antiparallèles. Sur une matrice, ce sens pointe vers la fourche et la synthèse est continue ; sur l'autre, il s'en éloigne, et la polymérase doit repartir d'une nouvelle amorce chaque fois que la fourche libère de la matrice.
Quelle différence entre hélicase et topoisomérase ?
L'hélicase sépare les deux brins au niveau de la fourche en rompant les liaisons hydrogène entre paires de bases ; la topoisomérase agit en avant de la fourche et supprime le surenroulement créé par l'ouverture. Elle coupe l'ADN de façon transitoire, puis le ressoude.
À quoi sert la primase et pourquoi faut-il des amorces d'ARN ?
La primase fabrique de courtes amorces d'ARN, d'environ 5 à 10 nucléotides, qui fournissent à l'ADN polymérase l'extrémité 3′-OH libre dont elle a besoin. L'ADN polymérase ne peut pas commencer un brin seule. Le brin précoce demande une amorce, le brin tardif une par fragment d'Okazaki.
Quelle différence entre l'ADN polymérase I et l'ADN polymérase III ?
Chez E. coli, l'ADN polymérase III est la principale enzyme de réplication, qui allonge les deux nouveaux brins ; l'ADN polymérase I élimine les amorces d'ARN et les remplace par de l'ADN. L'ADN ligase referme ensuite la coupure entre chaque amorce remplacée et le fragment voisin.
Pourquoi dit-on que la réplication de l'ADN est semi-conservative ?
Parce que chaque nouvelle molécule d'ADN garde l'un des deux brins d'origine et l'associe à un brin néosynthétisé. Meselson et Stahl ont cultivé E. coli sur azote lourd, puis léger : après une génération, l'ADN formait une seule bande de densité intermédiaire, après deux une bande légère apparaissait à côté, un profil que seule la réplication semi-conservative produit.
En quoi la réplication des eucaryotes diffère-t-elle de celle des procaryotes ?
Les eucaryotes répliquent à partir de nombreuses origines par chromosome (jusqu'à 100 000 dans le génome humain), à environ 50 à 100 nucléotides par seconde, contre une seule origine et environ 1 000 nucléotides par seconde chez E. coli. Ils utilisent aussi d'autres polymérases (α, δ et ε), le collier PCNA, la RNase H pour retirer les amorces et la télomérase aux extrémités des chromosomes.
Peut-on faire un dessin simple de la réplication de l'ADN pour des élèves plus jeunes ?
Oui : demandez une vue d'ensemble simple et le schéma se limite à l'essentiel : la double hélice qui s'ouvre, chaque ancien brin associé à un nouveau, et deux molécules identiques à la fin. Cinq annotations au plus suffisent généralement au collège.
Comment l'outil garantit-il le sens des brins et la place des enzymes ?
La consigne disciplinaire est intégrée. Chaque rendu doit suivre la représentation standard des manuels (brins antiparallèles, nouvel ADN allongé dans le sens 5′→3′, fragments d'Okazaki sur le seul brin tardif), avec des annotations orthographiées exactement sur des traits de rappel droits. Vérifiez les termes par rapport à votre programme avant d'imprimer ; le canevas permet de corriger chaque annotation sur place.
Puis-je utiliser un schéma de la réplication de l'ADN fait ici en cours magistral ou dans un article ?
Oui : les schémas de réplication que vous générez sont à vous, pour des fiches de génétique, des diaporamas de cours, des comptes rendus de TP et des mémoires. L'export va jusqu'à 4K selon le modèle.
Puis-je développer les noms des enzymes ou traduire les légendes après coup ?
Oui. Le canevas reconnaît chaque légende : vous pouvez remplacer « protéines SSB » par « protéines fixant l'ADN simple brin », traduire l'ensemble, écarter une légende de la fourche ou recolorer les brins néoformés sans régénérer la figure.
À explorer aussi
Nos autres outils de schémas, et les guides qui vont avec.
Outils
À lire
Dessinez votre schéma de la réplication de l'ADN
D'une ligne de texte à une fourche de réplication dont les enzymes et les deux brins sont nommés, en une minute environ.
Commencer à dessiner