
Schema der DNA-Replikation erstellen
Beschriftete Schemata der DNA-Replikation: die Replikationsgabel mit Helikase, Primase, Polymerase und Ligase, Leit- und Folgestrang mit Okazaki-Fragmenten, die Replikationsblase und die Telomerase. Geeignet für den Biologieunterricht.
DNA-Replikation – Beispielschemata
Vier Schemata der DNA-Replikation: voll beschriftete Gabel, einfacher Überblick, Leit- vs. Folgestrang und leeres Arbeitsblatt. Jedes Bild ist ein echtes Rendering seines Prompts; ein Klick lädt ihn zum Bearbeiten.
Die Enzyme der DNA-Replikation und ihre Aufgaben im beschrifteten Schema
Die Proteine, die ein beschriftetes Replikationsschema üblicherweise zeigt, was sie tun und wo sie an der Gabel sitzen. Das ist der Standardumfang, solange Sie keinen kürzeren verlangen.
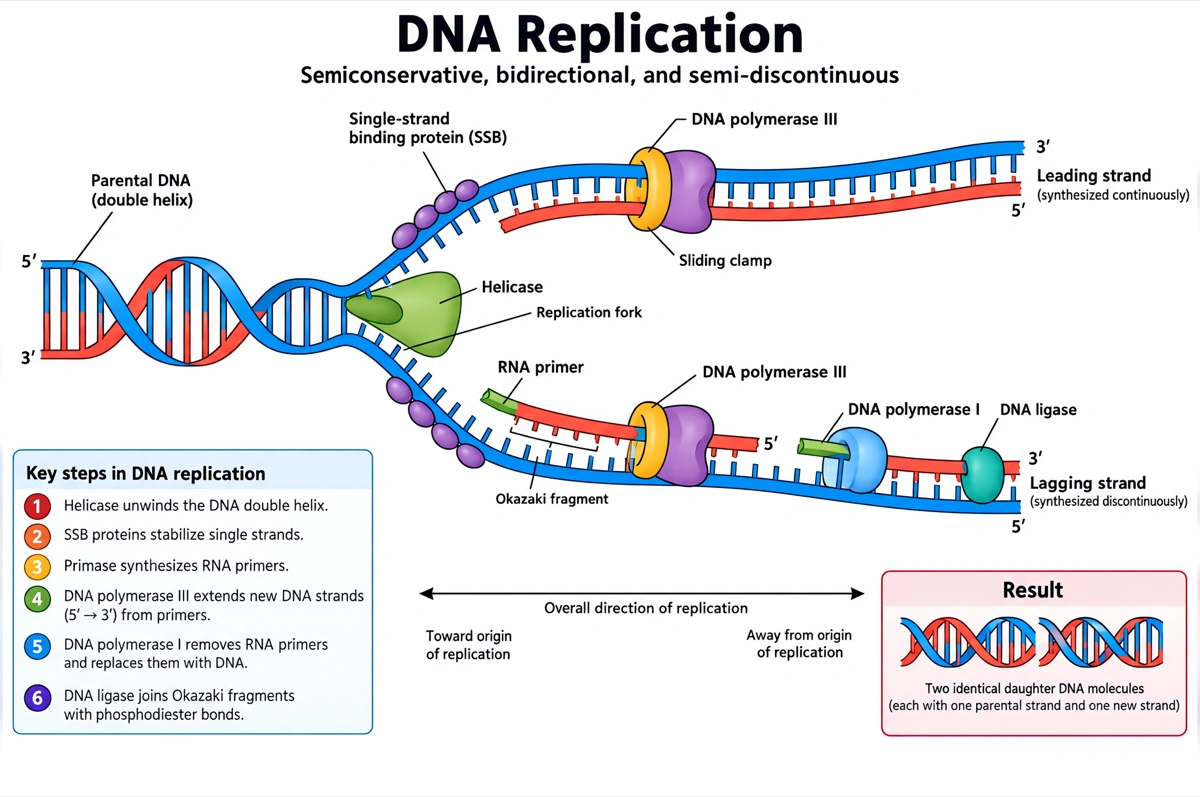
| Enzym oder Protein | Aufgabe | Wo es hingehört |
|---|---|---|
| Helikase | Entwindet die Doppelhelix, indem sie unter ATP-Verbrauch die Wasserstoffbrücken zwischen den Basenpaaren löst | An der Spitze der Gabel, wo sich die Elternhelix teilt |
| Einzelstrang-bindende Proteine (SSB) | Belegen die getrennten Stränge, damit sie sich nicht wieder paaren | Entlang beider freiliegender Einzelstränge |
| Topoisomerase | Baut die Überspiralisierung vor der Gabel ab, indem sie die DNA kurz schneidet und wieder verknüpft | Auf der noch geschlossenen Doppelhelix vor der Gabel |
| Primase | Bildet kurze RNA-Primer als Startpunkt für die DNA-Polymerase | An den Matrizen, am Folgestrang ein Primer pro Okazaki-Fragment |
| DNA-Polymerase III | Haupt-Replikationsenzym der Bakterien, verlängert in 5′→3′-Richtung | An beiden neuen Strängen, ab den Primern |
| Gleitklammer | Ring, der die DNA-Polymerase beim Vorrücken an der DNA hält | Um die DNA an jeder Polymerase |
| DNA-Polymerase I | Entfernt die RNA-Primer und füllt die Lücken mit DNA auf | Am Folgestrang, an den Primern fertiger Fragmente |
| DNA-Ligase | Verschließt die Brüche durch Bildung von Phosphodiesterbindungen | Zwischen benachbarten Okazaki-Fragmenten |
Wie viele davon verlangt werden, hängt vom Kurs ab. Für den Einstieg genügen oft Helikase, DNA-Polymerase und Ligase; in der Oberstufe und fürs Abitur kommen Primase, Gleitklammer und der Unterschied zwischen DNA-Polymerase I und III hinzu. Nennen Sie die gewünschten Beschriftungen, und nur diese werden gezeichnet.
Replikationsgabel, Replikationsblase, Okazaki-Fragmente: Schemata der DNA-Replikation nach Schwerpunkt
Die DNA-Replikation wird in drei Maßstäben gezeichnet – ein ganzes Molekül, das sich verdoppelt, eine Replikationsblase oder die Enzyme an einer einzelnen Gabel –, und manche Abbildungen gehen noch näher an ein einzelnes Enzym heran. Sagen Sie, was Sie brauchen; Standard ist die vollständige Gabel oben.
Replikationsgabel
Das Y, an dem sich die elterliche Helix teilt: die Helikase an der Spitze, Einzelstrang-bindende Proteine auf den offenen Strängen, die Topoisomerase auf der noch geschlossenen Helix davor, der Leitstrang, der kontinuierlich zur Gabel hin wächst, und der Folgestrang in Okazaki-Fragmenten, der von ihr weg wächst. Jedes Strangende sollte 5′ oder 3′ tragen; prüfen Sie vor allem anderen, dass die beiden Matrizenstränge antiparallel verlaufen.
Replikationsblase (Replikationsauge)
Der Replikationsursprung, zu einer Blase geöffnet, mit einer Gabel an jedem Ende, die sich von der anderen wegbewegt – die Replikation verläuft bidirektional. Jeder Matrizenstrang wird an der einen Gabel als Leitstrang und an der anderen als Folgestrang kopiert, deshalb liegen die Okazaki-Fragmente auf den beiden Seiten der Blase auf verschiedenen Strängen. Sie an beiden Gabeln auf denselben Strang zu zeichnen, ist der typische Fehler.
Leitstrang und Folgestrang (Okazaki-Fragmente)
Eine Nahansicht der beiden neuen Stränge: ein durchgehender Leitstrang ab einem einzigen Primer und ein Folgestrang aus Fragmenten – bei Bakterien je etwa 1.000–2.000 Nukleotide, bei Eukaryoten 100–200 –, jedes mit seinem eigenen RNA-Primer begonnen. Zeigen Sie das jüngste Fragment an der Gabel noch mit seinem Primer, ein älteres, dessen Primer die DNA-Polymerase I gerade durch DNA ersetzt, und die DNA-Ligase, die die letzte Lücke schließt.
Ablauf der DNA-Replikation
Der Vorgang in nummerierten Schritten, auf der Gabel oder als Flussdiagramm: Die Helikase öffnet die Helix am Ursprung, Einzelstrang-bindende Proteine halten die Stränge auseinander und die Topoisomerase löst die Verdrillung davor, die Primase setzt RNA-Primer, die DNA-Polymerase III verlängert sie in 5′→3′-Richtung, die DNA-Polymerase I ersetzt die Primer durch DNA, und die DNA-Ligase verbindet die Fragmente.
DNA-Polymerase
Eine Polymerase an der Stelle, wo Primer und Matrize aufeinandertreffen: Ein ankommendes Nukleotid paart mit der nächsten Base der Matrize und wird an das freie 3′-OH-Ende des neuen Strangs geknüpft, dabei wird Pyrophosphat frei. Ergänzen Sie die 3′→5′-Exonuklease-Stelle, wenn das Korrekturlesen Thema ist – die Polymerase setzt zurück und entfernt eine falsch gepaarte Base, bevor sie weitermacht.
Helikase
Die Helikase als Ring aus sechs Untereinheiten um einen Strang, die mit ATP die beiden Stränge an der Gabel auseinandertreibt; hinter ihr bedecken Einzelstrang-bindende Proteine die Stränge, vor ihr löst die Topoisomerase die Überdrehung.
Telomerase
Das Endreplikationsproblem und seine Lösung. Wird der letzte RNA-Primer am Ende eines linearen Chromosoms entfernt, kann nichts die Lücke füllen, sodass jede Runde das Chromosom verkürzen würde. Die Telomerase trägt ihre eigene RNA-Matrize und hängt TTAGGG-Wiederholungen an das 3′-Ende des überstehenden Strangs. Sie ist in Keimzellen und adulten Stammzellen aktiv, in den meisten Körperzellen Erwachsener nicht.
DNA-Replikation bei Prokaryoten und Eukaryoten
Nebeneinander: ein ringförmiges Bakterienchromosom, kopiert von einem einzigen Ursprung aus, dessen zwei Gabeln sich auf der gegenüberliegenden Seite treffen; ein lineares Eukaryotenchromosom mit vielen Ursprüngen, deren Blasen wachsen, bis sie verschmelzen. Beschriften Sie die Unterschiede – etwa 1.000 Nukleotide pro Sekunde gegenüber 50 bis 100, DNA-Polymerase III gegenüber den Polymerasen α, δ und ε, die β-Gleitklammer gegenüber PCNA und Telomerase nur bei Eukaryoten.
DNA-Replikation einfach zeichnen
Eine Leiter, die sich in der Mitte wie ein Reißverschluss öffnet, jede Hälfte paart sich mit neuen Basen, und am Ende stehen zwei gleiche Moleküle. Sind die alten Stränge in einer Farbe und die neuen in einer anderen gezeichnet, ist das semikonservative Ergebnis ohne ein Wort Erklärung zu sehen. Höchstens fünf Beschriftungen, für die erste Genetikstunde.
Was zeigt ein Schema der DNA-Replikation?
Ein Schema der DNA-Replikation zeigt, wie die Zelle ihre DNA an der Replikationsgabel verdoppelt: Die Helikase trennt die beiden Stränge, die Primase setzt kurze RNA-Primer, die DNA-Polymerase baut jeden neuen Strang in 5′→3′-Richtung – den Leitstrang am Stück, den Folgestrang in Okazaki-Fragmenten – und die DNA-Ligase schließt die Lücken. Jedes fertige Molekül besteht aus einem alten und einem neuen Strang.
Auf einen Blick
- Die Replikation ist semikonservativ. Jedes Tochtermolekül behält einen Elternstrang und paart ihn mit einem neu gebildeten – so zeigten es Meselson und Stahl mit E. coli auf schwerem, dann leichtem Stickstoff.
- Neue DNA wächst nur in 5′→3′-Richtung. Die DNA-Polymerase hängt Nukleotide nur an ein freies 3′-OH-Ende, deshalb beginnt jeder neue Strang an einem Primer und verläuft antiparallel zu seiner Matrize.
- Ein neuer Strang entsteht am Stück, der andere in Teilen. Der Leitstrang wächst von einem einzigen Primer aus auf die Gabel zu; der Folgestrang wächst von ihr weg in kurzen Okazaki-Fragmenten, jedes mit eigenem RNA-Primer.
- Primer bestehen aus RNA und werden ersetzt. Die Primase bildet RNA-Primer von etwa 5 bis 10 Nukleotiden; bei Bakterien tauscht die DNA-Polymerase I sie gegen DNA aus, und die DNA-Ligase verschließt die verbleibenden Einzelstrangbrüche.
- Bakterien starten an einem Ursprung, Eukaryoten an vielen. E. coli kopiert sein Chromosom mit 4,6 Millionen Basenpaaren von einem einzigen Replikationsursprung aus in etwa 42 Minuten; das menschliche Genom nutzt bis zu 100.000 Ursprünge.
Leitstrang und Folgestrang: Was ist der Unterschied?
Der Leitstrang wird von einem einzigen Primer aus kontinuierlich auf die Replikationsgabel zu gebaut; der Folgestrang entsteht von der Gabel weg in kurzen Okazaki-Fragmenten, jedes mit eigenem RNA-Primer, die später die DNA-Ligase verbindet. Beide wachsen in 5′→3′-Richtung – der Unterschied kommt daher, dass die beiden Matrizenstränge gegenläufig sind.
| Leitstrang | Folgestrang | |
|---|---|---|
| Syntheserichtung | Auf die Replikationsgabel zu | Von der Replikationsgabel weg |
| Art der Synthese | Kontinuierlich, in einem Stück | Diskontinuierlich, in Okazaki-Fragmenten |
| RNA-Primer | Einer, am Anfang | Einer pro Okazaki-Fragment |
| Matrize | Komplementär zum 3′→5′-Elternstrang | Komplementär zum 5′→3′-Elternstrang |
| Hauptpolymerase bei E. coli | DNA-Polymerase III | DNA-Polymerase III |
| Hauptpolymerase bei Eukaryoten | DNA-Polymerase ε | DNA-Polymerase δ |
| Nach der Synthese | Der eine Primer wird durch DNA ersetzt | Jeder Primer wird ersetzt, die DNA-Ligase verbindet die Fragmente |
Zeichnen Sie den Folgestrang als Reihe kurzer Abschnitte mit Pfeilen, die von der Gabel weg zeigen, das jüngste Fragment nahe der Gabel noch mit seinem RNA-Primer. Ein Folgestrang als durchgehender Pfeil oder mit Pfeilen in die Gabel hinein ist der Fehler, auf den Sie zuerst prüfen sollten.
Häufige Fragen zum Schema der DNA-Replikation
Was gehört in ein beschriftetes Schema der DNA-Replikation?
Zum Standardumfang gehören Eltern-DNA, Replikationsgabel, Helikase, Einzelstrang-bindende Proteine, Topoisomerase, Primase mit RNA-Primern, DNA-Polymerase III, Leitstrang, Folgestrang mit Okazaki-Fragmenten, DNA-Polymerase I und DNA-Ligase, dazu die markierten 5′- und 3′-Enden. Verlangen Sie weniger Beschriftungen, werden nur diese gezeichnet.
Was ist eine Replikationsblase?
Der geöffnete DNA-Abschnitt um einen Replikationsursprung, mit einer Replikationsgabel an jedem Ende, die sich von der anderen wegbewegt. Weil die Replikation vom Ursprung aus in beide Richtungen läuft, wächst die Blase, bis sie auf ihre Nachbarn trifft. Ein eukaryotisches Chromosom bildet viele Blasen gleichzeitig; das ringförmige Chromosom von E. coli hat nur einen Ursprung, und seine beiden Gabeln treffen sich auf der gegenüberliegenden Seite des Rings.
Warum entsteht der Folgestrang in Okazaki-Fragmenten?
Weil die DNA-Polymerase nur in 5′→3′-Richtung synthetisieren kann und die beiden Matrizenstränge gegenläufig sind. Auf der einen Matrize zeigt diese Richtung in die Gabel, die Synthese läuft durch; auf der anderen zeigt sie weg, und die Polymerase muss jedes Mal an einem neuen Primer beginnen, wenn die Gabel weitere Matrize freilegt.
Was unterscheidet Helikase und Topoisomerase?
Die Helikase trennt an der Gabel die beiden Stränge, indem sie die Wasserstoffbrücken zwischen den Basenpaaren löst; die Topoisomerase arbeitet vor der Gabel und baut die Überspiralisierung ab, die das Entwinden erzeugt. Dazu schneidet sie die DNA vorübergehend und verknüpft sie wieder.
Was macht die Primase, und wozu braucht man RNA-Primer?
Die Primase bildet kurze RNA-Primer von etwa 5 bis 10 Nukleotiden, die der DNA-Polymerase das nötige freie 3′-OH-Ende liefern. Selbst beginnen kann die DNA-Polymerase keinen Strang. Der Leitstrang braucht einen Primer, der Folgestrang einen pro Okazaki-Fragment.
Was ist der Unterschied zwischen DNA-Polymerase I und III?
Bei E. coli ist die DNA-Polymerase III das Haupt-Replikationsenzym, das beide neuen Stränge verlängert; die DNA-Polymerase I entfernt die RNA-Primer und ersetzt sie durch DNA. Die DNA-Ligase verschließt danach den Bruch zwischen jedem ersetzten Primer und dem benachbarten Fragment.
Warum heißt die DNA-Replikation semikonservativ?
Weil jedes neue DNA-Molekül einen der beiden ursprünglichen Stränge behält und mit einem neu gebildeten paart. Meselson und Stahl zogen E. coli erst auf schwerem, dann auf leichtem Stickstoff an: Nach einer Generation bildete die DNA eine einzige Bande mittlerer Dichte, nach zwei kam eine leichte Bande hinzu – ein Muster, das nur die semikonservative Replikation erzeugt.
Wie unterscheidet sich die Replikation bei Eukaryoten und Prokaryoten?
Eukaryoten replizieren von vielen Ursprüngen pro Chromosom aus – beim Menschen bis zu 100.000 im Genom – mit etwa 50 bis 100 Nukleotiden pro Sekunde, E. coli dagegen von einem Ursprung aus mit etwa 1.000 Nukleotiden pro Sekunde. Eukaryoten nutzen zudem andere Polymerasen (α, δ und ε), die Klammer PCNA, RNase H zum Entfernen der Primer und Telomerase an den Chromosomenenden.
Geht auch eine einfache Zeichnung der DNA-Replikation für jüngere Klassen?
Ja – verlangen Sie einen einfachen Überblick, und das Schema beschränkt sich aufs Wesentliche: die sich öffnende Doppelhelix, jeder alte Strang mit einem neuen gepaart, am Ende zwei identische Moleküle. Für die Mittelstufe reichen meist fünf Beschriftungen oder weniger.
Wie stellt das Tool sicher, dass Strangrichtung und Enzyme stimmen?
Die fachliche Vorgabe ist eingebaut. Jedes Bild wird angewiesen, der üblichen Lehrbuchdarstellung zu folgen – Stränge antiparallel, neue DNA in 5′→3′-Richtung, Okazaki-Fragmente nur am Folgestrang – mit exakt geschriebenen Beschriftungen an geraden Bezugslinien. Prüfen Sie die Begriffe vor dem Druck an Ihrem Lehrplan; auf der Leinwand lässt sich jede Beschriftung direkt korrigieren.
Darf ich ein Schema der DNA-Replikation von hier in der Vorlesung oder in einem Fachartikel verwenden?
Ja – die Replikationsschemata, die Sie erzeugen, gehören Ihnen und lassen sich in Genetik-Arbeitsblättern, Vorlesungsfolien, Protokollen und Abschlussarbeiten verwenden. Der Export reicht je nach Modell bis 4K.
Kann ich die Enzymnamen nachträglich abkürzen oder die Beschriftung übersetzen?
Ja. Die Leinwand erkennt jede Beschriftung: Sie können „Einzelstrang-bindende Proteine“ zu „SSB“ kürzen, den Satz übersetzen, eine Beschriftung von der Gabel wegschieben oder die neuen Stränge umfärben, ohne die Abbildung neu zu erzeugen.
Mehr entdecken
Unsere übrigen Diagramm-Werkzeuge und die Anleitungen dazu.
Werkzeuge
Artikel
Zeichnen Sie Ihr Schema der DNA-Replikation
Von einer Zeile Text zur Replikationsgabel mit benannten Enzymen und beiden Strängen – in etwa einer Minute.
Jetzt zeichnen