
Schema des TGF-β-Signalwegs erstellen
Schemata des TGF-β-Signalwegs: Aktivierung des latenten TGF-beta, Typ-II-Rezeptor und ALK5, SMAD2/3 mit SMAD4 und SMAD7-Rückkopplung, dazu Nicht-SMAD-Zweige, EMT und Wirkstoffziele. Ausgerichtet auf Fibrose- und Krebsforschung.
TGF-β-Signalweg in Beispielen
Echte Renderings von vier Prompts zum TGF-β-Signalweg: voll beschriftet mit SMAD7-Rückkopplung, als Überblick mit sechs Begriffen, bei Fibrose und als leeres Arbeitsblatt. Ein Klick lädt den Prompt zum Bearbeiten.
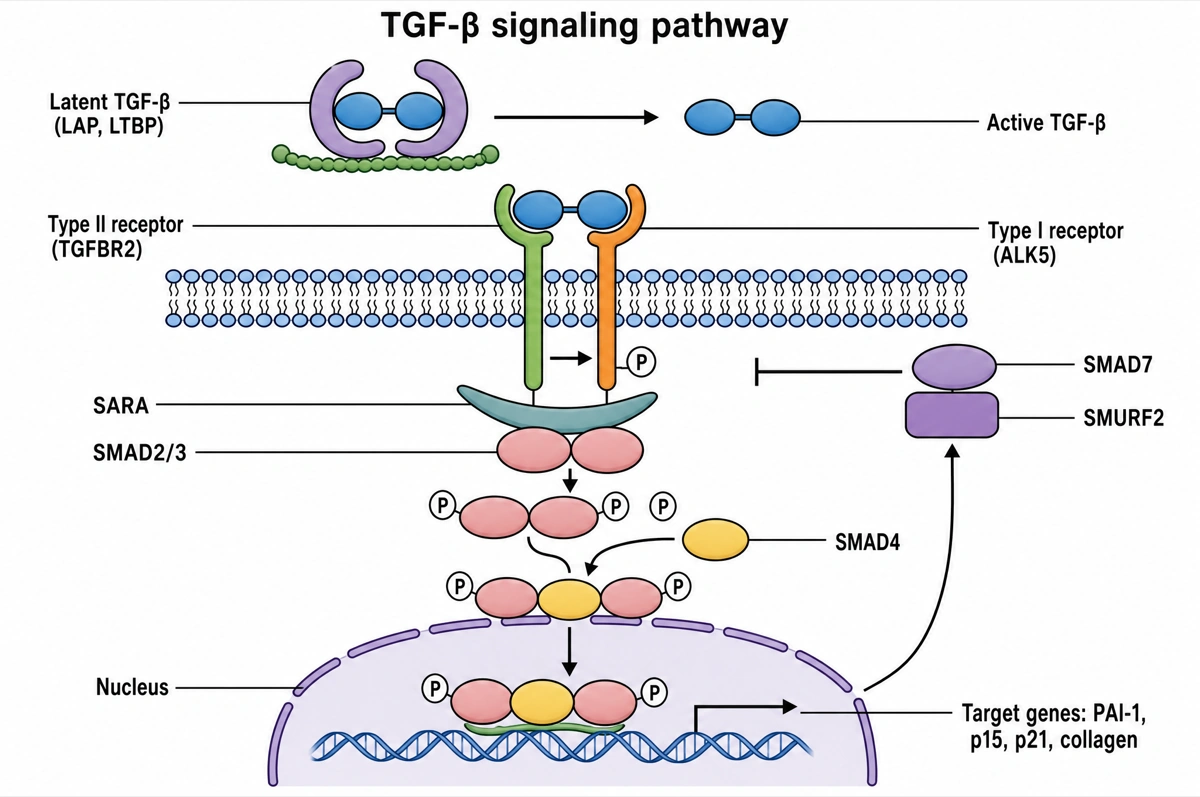
Zwei Kinasen, die SMADs und eine Bremse
Von oben nach unten, dann rechts hoch zur Rückkopplung.
- 1
Latentes → aktives TGF-β
Aktives TGF-β wird außerhalb der Zelle aus LAP und LTBP frei.
- 2
TGFBR2 → ALK5
TGF-β bindet TGFBR2, der den Typ-I-Rezeptor ALK5 phosphoryliert.
- 3
SARA, SMAD2/3 und SMAD4
ALK5 phosphoryliert SMAD2/3; mit SMAD4 gehen sie in den Zellkern.
- 4
Zielgene und SMAD7
PAI-1, p15, p21, Kollagen an; SMAD7 mit SMURF2 bremst ALK5.
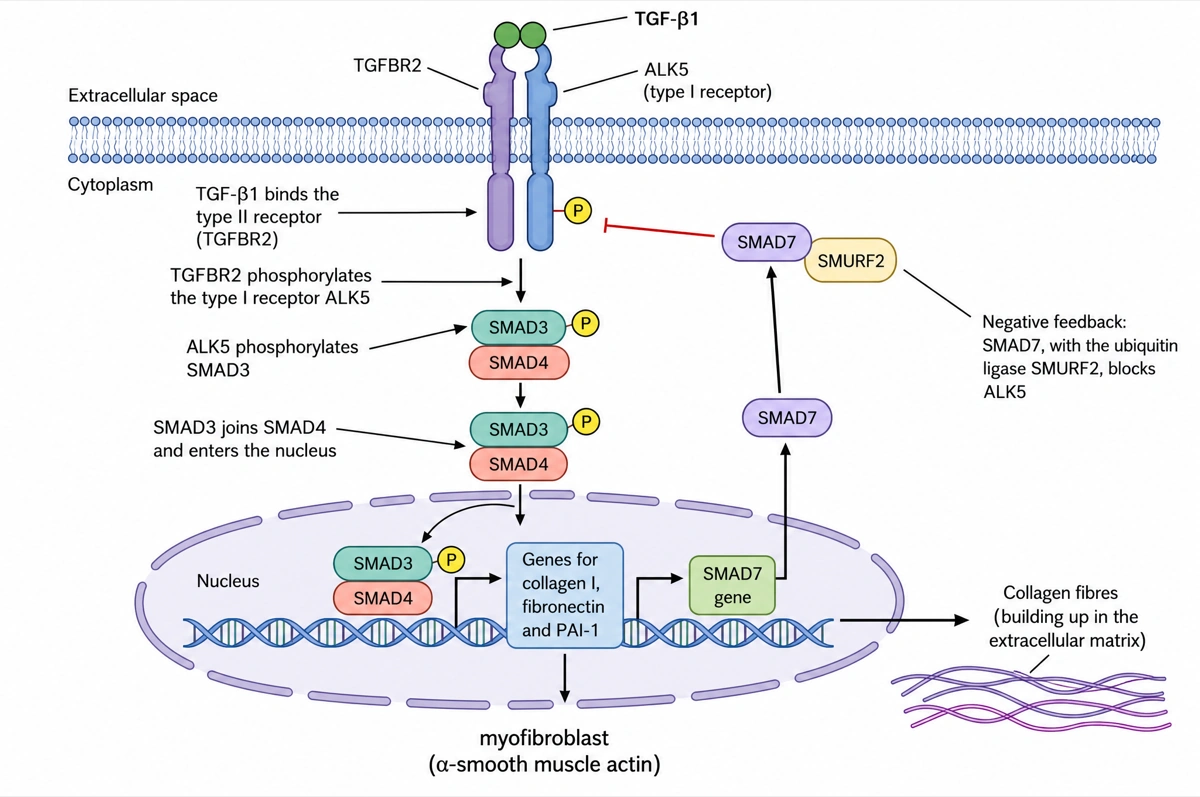
TGF-β1 treibt die Fibrose, SMAD7 hält dagegen
Mitte abwärts lesen, dann rechts den SMAD7-Arm hinauf.
- 1
TGFBR2 → ALK5 → SMAD3
Über beide Rezeptoren gelangen SMAD3 und SMAD4 in den Zellkern.
- 2
Gene → Myofibroblast
Kollagen I, Fibronektin, PAI-1 an; Kollagenfasern häufen sich an.
- 3
SMAD7-Rückkopplung
Auch das SMAD7-Gen springt an; SMAD7 mit SMURF2 blockiert ALK5.
TGF-β-Abbildungen jenseits des SMAD-Kerns
Die Abbildungen oben zeigen den kanonischen SMAD2/3-Weg und sein Fibroseprogramm, die Tabelle weiter unten behandelt den BMP-Zweig mit SMAD1/5/8. Zellbiologie, Onkologie und Immunologie zeichnen TGF-β außerdem in den folgenden Abbildungen.
Kanonische und nicht-kanonische TGF-β-Signalübertragung
Der SMAD-Zweig in der Mitte nach unten, die rezeptorgetriebenen Zweige daneben. Am Rezeptor gebundenes TRAF6 aktiviert TAK1, das über MKK3/6 zu p38 und über MKK4 zu JNK führt; ALK5 phosphoryliert ShcA, das Grb2–SOS rekrutiert und Ras–ERK aktiviert; PI3K aktiviert Akt und mTORC1; und TGFBR2 phosphoryliert PAR6, das SMURF1 heranholt, um RhoA an den Tight Junctions abzubauen. Zeichnen Sie diese als eigene Pfeile vom Rezeptorkomplex aus, nicht von den SMADs.
Aktivierung von latentem TGF-β
Die extrazelluläre Hälfte des Signalwegs. Das reife Dimer bleibt in seine Prodomäne, das LAP, gehüllt – der kleine latente Komplex –, und LTBP-1, über eine Disulfidbrücke an LAP gebunden, verankert es an Fibrillin und Fibronektin der Matrix. Die Integrine αvβ6 auf Epithelzellen und αvβ8 binden ein RGD-Motiv im LAP von TGF-β1 und TGF-β3 (TGF-β2 hat keines); αvβ6 setzt das Zytokin frei, indem es gegen das verankerte LTBP zieht. Auf regulatorischen T-Zellen und Thrombozyten hält GARP latentes TGF-β1 anstelle von LTBP an der Zelloberfläche. Auch die Genetik gehört hierher: Fibrillin-1-Mutationen beim Marfan-Syndrom sowie TGFBR1, TGFBR2, SMAD2, SMAD3, TGFB2 und TGFB3 beim Loeys-Dietz-Syndrom, beide mit Aortenaneurysma.
TGF-β und epithelial-mesenchymale Transition (EMT)
Eine Epithelzelle wird Schritt für Schritt mesenchymal. SMAD3–SMAD4 mit Partnerfaktoren induzieren die EMT-Transkriptionsfaktoren SNAIL, SLUG (SNAI2), ZEB1/ZEB2 und TWIST; diese unterdrücken E-Cadherin (CDH1), während N-Cadherin, Vimentin und Fibronektin ansteigen; die Zelle verliert Tight Junctions und apikobasale Polarität und wird beweglich. In Krebsabbildungen zeichnen Sie die EMT als Spektrum mit partiellen, hybriden Zuständen statt als einzelnen Schalter.
Vom Tumorsuppressor zum Tumorpromotor
Zwei Felder für zwei Stadien. In der frühen Epithelzelle induziert der SMAD-Komplex p15INK4B und p21 und unterdrückt MYC und die ID-Gene, und die Zelle bleibt in G1 stehen. Im fortgeschrittenen Karzinom fehlt der zytostatische Arm – TGFBR2-Frameshift-Mutationen bei den meisten mikrosatelliteninstabilen kolorektalen Karzinomen, SMAD4-Verlust bei etwa der Hälfte der Pankreaskarzinome –, während Tumor und Stroma TGF-β für EMT, Invasion, Angiogenese und Immunevasion nutzen. Knochenmetastasen beim Mammakarzinom sind das durchgearbeitete Beispiel: Aus dem Knochen freigesetztes TGF-β induziert PTHrP in den Tumorzellen, PTHrP treibt die Osteoklasten an, und der abgebaute Knochen setzt weiteres TGF-β frei.
TGF-β in der T-Zell-Differenzierung
TGF-β als Zytokin des Immunsystems. Mit IL-2 lenkt es naive CD4⁺-T-Zellen zu FOXP3⁺-regulatorischen T-Zellen, mit IL-6 oder IL-21 zu Th17-Zellen mit RORγt, mit IL-4 zu Th9-Zellen. Es unterdrückt außerdem Effektor-T-Zellen und NK-Zellen und hält in Tumoren T-Zellen aus dem Tumorkern heraus; das ist die Begründung dafür, eine TGF-β-Blockade mit PD-1- oder PD-L1-Antikörpern zu kombinieren. Mäuse ohne TGF-β1 sterben innerhalb weniger Wochen an einer ausgedehnten Entzündung.
Wo TGF-β-Hemmer ansetzen
Jede Klasse auf ihrer eigenen Ebene. Ligand: Fresolimumab, ein Antikörper, der alle drei TGF-β-Isoformen neutralisiert; Bintrafusp alfa, ein PD-L1-Antikörper, fusioniert mit der Ektodomäne von TGFBR2 als Ligandenfalle, der in Phase 3 gescheitert ist. Rezeptorkinase: Galunisertib und Vactosertib hemmen ALK5. Die körpereigenen Bremsen stehen daneben: SMAD7 am Rezeptor, SKI und SnoN am SMAD-Komplex, Decorin in der Matrix. Keiner dieser Wirkstoffe ist für eine TGF-β-Indikation zugelassen; Luspatercept und Sotatercept, zugelassene Wirkstoffe der erweiterten Familie, sind Ligandenfallen auf Basis des Activin-Rezeptors, die Activine und GDFs binden, nicht TGF-β.
Was ist der TGF-β-Signalweg?
Der TGF-β-Signalweg leitet ein Signal des Transforming Growth Factor beta von der Zelloberfläche in den Zellkern: TGF-β bindet den Typ-II-Rezeptor (TGFBR2), der den Typ-I-Rezeptor ALK5 (TGFBR1) phosphoryliert; ALK5 phosphoryliert SMAD2 und SMAD3, die sich mit SMAD4 verbinden und im Zellkern Zielgene steuern. SMAD7, eines dieser Zielgene, fährt den Rezeptor wieder herunter.
Auf einen Blick
- TGF-β entsteht in latenter Form. Furin schneidet die Vorstufe, doch das Latenz-assoziierte Peptid (LAP) bleibt um das reife Dimer gelegt, und LTBPs verankern es in der extrazellulären Matrix; Integrine wie αvβ6 und αvβ8, Proteasen, Thrombospondin-1 und Säure setzen das aktive Zytokin frei.
- Beide Rezeptoren sind Serin/Threonin-Kinasen. TGF-β bindet zuerst TGFBR2; dieser holt TGFBR1 (ALK5) heran und phosphoryliert dessen glycin- und serinreiche GS-Domäne, und der aktive Komplex enthält zwei Typ-II- und zwei Typ-I-Rezeptoren.
- SMAD2 und SMAD3 sind die R-SMADs, SMAD4 ist das einzige Co-SMAD. Das Adapterprotein SARA präsentiert SMAD2/3 dem ALK5, der zwei Serine am C-Terminus phosphoryliert; die phosphorylierten R-SMADs bilden dann mit SMAD4 einen Komplex, der in den Zellkern wandert.
- Der Signalweg schaltet sich selbst ab. Der SMAD2/3–SMAD4-Komplex induziert SMAD7, das mit SMAD2/3 um ALK5 konkurriert und die Ubiquitin-Ligasen SMURF1, SMURF2 und NEDD4L an den Rezeptor bringt, der daraufhin abgebaut wird.
- Dasselbe Signal hemmt frühe Tumoren und fördert späte. In normalen und prämalignen Zellen stoppt TGF-β den Zellzyklus, indem es p15 und p21 induziert und MYC unterdrückt; in fortgeschrittenen Karzinomen treibt es die epithelial-mesenchymale Transition, Invasion und Metastasierung an.
Bestandteile des TGF-β-Signalwegs und ihre Aufgaben
Die Moleküle, die ein beschriftetes Schema des TGF-β-Signalwegs üblicherweise zeigt, in der Reihenfolge, in der das Signal sie durchläuft. Das ist der Standard-Beschriftungssatz, solange Sie keinen kürzeren verlangen.
| Bestandteil | Aufgabe | Wo er hingehört |
|---|---|---|
| Latenter TGF-β-Komplex (LAP, LTBP) | Hält reifes TGF-β inaktiv und speichert es in der extrazellulären Matrix | Oben, im Extrazellulärraum |
| Aktivatoren (Integrine αvβ6 und αvβ8, Proteasen) | Setzen das aktive TGF-β-Dimer aus dem LAP frei | Neben dem latenten Komplex |
| TGF-β-Dimer | Der aktive Ligand – TGF-β1, TGF-β2 oder TGF-β3 | Über der Membran, an die Rezeptoren gebunden |
| Typ-II-Rezeptor (TGFBR2) | Kinase, die TGF-β zuerst bindet und den Typ-I-Rezeptor phosphoryliert | Durch die Membran |
| Typ-I-Rezeptor (ALK5, TGFBR1) | Kinase, die durch Phosphorylierung ihrer GS-Domäne angeschaltet wird; phosphoryliert SMAD2 und SMAD3 | Durch die Membran neben TGFBR2, mit eingekreistem P |
| SARA | Adapter, der SMAD2/3 dem ALK5 präsentiert | Direkt unter der Membran neben ALK5 – genau genommen an frühen Endosomen |
| SMAD2 und SMAD3 (R-SMADs) | Von ALK5 an zwei C-terminalen Serinen phosphoryliert, dann freigesetzt | Im Cytoplasma, jeweils mit eingekreistem P |
| SMAD4 (Co-SMAD) | Gemeinsamer Partner, der den SMAD2/3–SMAD4-Komplex bildet | Im Cytoplasma, zu den R-SMADs stoßend |
| Partner-Transkriptionsfaktoren | DNA-bindende Partner wie SP1 und FOXO sowie Koaktivatoren wie p300, die die Gene auswählen | Auf der DNA im Zellkern |
| Zielgene | PAI-1 (SERPINE1), p15 (CDKN2B), p21 (CDKN1A), Kollagen (COL1A2), JUNB und SMAD7 an; MYC aus | Im Zellkern, ganz unten |
| SMAD7 mit SMURF1/2 | Inhibitorisches SMAD, das ALK5 blockiert und abbauen lässt | Balken mit flachem Ende vom Zellkern zurück zu ALK5 |
Die Tiefe hängt vom Kurs ab. Ein Einstieg zeigt TGF-β, die beiden Rezeptoren, SMAD2/3, SMAD4 und Zielgene; im Zellbiologie-Kurs kommen SARA, SMAD7 und SMURFs dazu, in Vertiefungskursen der latente Komplex und die Nicht-SMAD-Zweige – TAK1 zu p38 und JNK, PI3K zu AKT. Viele Lehrbücher zeichnen die SMAD-Phosphorylierung an der Plasmamembran, Reactome dagegen an frühen Endosomen nach der Internalisierung der Rezeptoren.
TGF-β- vs. BMP-Signalweg: Was ist der Unterschied?
TGF-β- und BMP-Signalweg nutzen dieselbe Maschinerie – einen Typ-II-Rezeptor, der einen Typ-I-Rezeptor phosphoryliert, R-SMADs und SMAD4 –, doch TGF-β signalisiert über ALK5 und SMAD2/3, BMPs dagegen über ALK2, ALK3 oder ALK6 und SMAD1/5/8. Beide gehören zur TGF-β-Familie mit 33 Mitgliedern beim Menschen.
| TGF-β-Zweig | BMP-Zweig | |
|---|---|---|
| Liganden | TGF-β1, TGF-β2, TGF-β3 (Activin und Nodal nutzen dieselben SMADs) | BMP2, BMP4, BMP6, BMP7, GDF5 und weitere |
| Typ-II-Rezeptor | TGFBR2 | BMPR2, ACVR2A, ACVR2B |
| Typ-I-Rezeptor | ALK5 (TGFBR1) | ALK3 (BMPR1A), ALK6 (BMPR1B), ALK2 (ACVR1); ALK1 für BMP9 und BMP10 |
| Bindungsreihenfolge | Bindet zuerst den Typ-II-Rezeptor | Kann Typ-I-Rezeptoren allein binden; beide Typen zusammen binden weit fester |
| R-SMADs | SMAD2, SMAD3 | SMAD1, SMAD5, SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| Ankerprotein | SARA | Endofin |
| DNA-Elemente | Vor allem das SMAD-Bindeelement (CAGAC) | GC-reiche Elemente sowie das SMAD-Bindeelement |
| Kontrolle außerhalb der Zelle | LAP hält TGF-β latent | Noggin und Gremlin 1 fangen BMPs ab |
| Typische Aufgaben | Wachstumsstopp, extrazelluläre Matrix, Immunregulation, Fibrose | Knochen- und Knorpelbildung; Entwicklung von Herz, Niere und Blutgefäßen |
Zeichnen Sie beide Zweige so, dass sie unterhalb der Rezeptoren nur SMAD4 teilen. Der klassische Fehler ist SMAD1/5/8 unter ALK5 oder SMAD2/3 unter einem BMP-Rezeptor. Hohe TGF-β-Konzentrationen können in Endothelzellen auch ALK1 aktivieren, doch das ist eine Ausnahme, nicht die Lehrbuchdarstellung.
Häufige Fragen zum TGF-β-Signalweg
Was gehört in ein beschriftetes Schema des TGF-β-Signalwegs?
Standard sind TGF-β, der Typ-II-Rezeptor (TGFBR2), der Typ-I-Rezeptor ALK5 (TGFBR1) mit seiner Phosphorylierung, SMAD2 und SMAD3 mit eingekreisten P, SMAD4, der SMAD-Komplex auf dem Weg in den Zellkern, Zielgene und SMAD7 als Rückkopplung zum Rezeptor. Ausführlichere Abbildungen ergänzen den latenten Komplex (LAP, LTBP), SARA und die SMURF-Ubiquitin-Ligasen.
Welche Schritte hat der TGF-β/SMAD-Signalweg?
Sechs Schritte: Aktives TGF-β wird aus dem latenten Komplex freigesetzt; es bindet TGFBR2; TGFBR2 holt ALK5 heran und phosphoryliert ihn; ALK5 phosphoryliert SMAD2 und SMAD3; phospho-SMAD2/3 binden SMAD4; der Komplex gelangt in den Zellkern und steuert dort mit Partner-Transkriptionsfaktoren die Zielgene. Das daraufhin gebildete SMAD7 fährt den Rezeptor wieder herunter.
Ist TGF-beta dasselbe wie TGF-β?
Ja – TGF-beta, TGF-β und TGF-b sind drei Schreibweisen für Transforming Growth Factor beta. Der Name umfasst drei menschliche Isoformen, TGF-β1, TGF-β2 und TGF-β3; Pathway-Datenbanken wie Reactome zeichnen TGF-β1.
Was macht SMAD7?
SMAD7 ist ein inhibitorisches SMAD, das den TGF-β-Signalweg abschaltet: Es bindet den aktivierten ALK5-Rezeptor, hält SMAD2/3 fern und holt SMURF1, SMURF2 oder NEDD4L heran, die den Rezeptor für den Abbau ubiquitinieren. Außerdem bringt es die Phosphatase PP1 mit, die die Phosphate von ALK5 entfernt. Weil SMAD2/3–SMAD4 das SMAD7-Gen anschalten, ist das eine negative Rückkopplung.
Welche Zielgene hat TGF-β?
Nur wenige sind in allen Zelltypen gleich – die Rückkopplungsregulatoren SMAD7 und SKIL (SnoN) sind die wichtigsten Ausnahmen. Bekannte, vom Zelltyp abhängige Zielgene sind PAI-1 (SERPINE1), die CDK-Inhibitoren p15 (CDKN2B) und p21 (CDKN1A), Kollagen Typ I (COL1A2), JUNB und SNAIL, während MYC unterdrückt wird.
Warum ist TGF-β zugleich Tumorsuppressor und Tumorpromotor?
Weil die Wirkung von der Zelle abhängt: In normalen und frühen Tumorzellen stoppt TGF-β den Zellzyklus, indem es p15 und p21 induziert und MYC unterdrückt, doch fortgeschrittene Karzinome, die diesen zytostatischen Arm verloren haben, nutzen das verbleibende Signal für epithelial-mesenchymale Transition, Invasion und Metastasierung. Der Verlust von CDKN2B oder geschwächte SMAD-Partner wie FOXO sind Wege, auf denen Tumoren diesen Wechsel vollziehen.
Wie verursacht TGF-β Fibrose?
Übermäßige TGF-β-Signale treiben Fibroblasten zur Umwandlung in Myofibroblasten, die Kollagen, Fibronektin und PAI-1 bilden und α-Glattmuskelaktin exprimieren – die extrazelluläre Matrix nimmt zu. Bei Mäusen schützt das Ausschalten von SMAD3 oder eine Erhöhung von SMAD7 vor experimenteller Lungenfibrose.
Was ist nicht-kanonische (SMAD-unabhängige) TGF-β-Signalübertragung?
Nicht-kanonische Signale sind die SMAD-unabhängigen Zweige, die dieselben Rezeptoren anschalten: TRAF-Proteine aktivieren TAK1, das zu p38 und JNK führt, und weitere Wege aktivieren ERK, PI3K–AKT, RHO-GTPasen und NF-κB. Die meisten Abbildungen zeigen sie als einen Seitenzweig der Rezeptoren.
Quellen
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
Mehr entdecken
Unsere übrigen Diagramm-Werkzeuge und die Anleitungen dazu.

Zeichnen Sie Ihren TGF-β-Signalweg
Von einer Zeile Beschreibung zum beschrifteten, druckfertigen Signalweg in etwa einer Minute.
Jetzt zeichnen