TGF-β 신호전달 경로 그림 생성기
잠복형 TGF-beta 활성화, 2형 수용체와 ALK5, SMAD2/3와 SMAD4, SMAD7 되먹임, 비SMAD 경로, EMT, 약물 표적까지 TGF-β 경로를 그립니다. 섬유화와 암 연구에 맞춘 도구입니다.
TGF-β 신호전달 경로 그림 예시
TGF-β 경로 프롬프트 네 개로 실제 생성한 그림입니다. SMAD7 되먹임을 넣은 전체 경로, 라벨 6개 개요, 섬유화, 빈칸 학습지. 클릭하면 프롬프트를 불러와 수정할 수 있습니다.
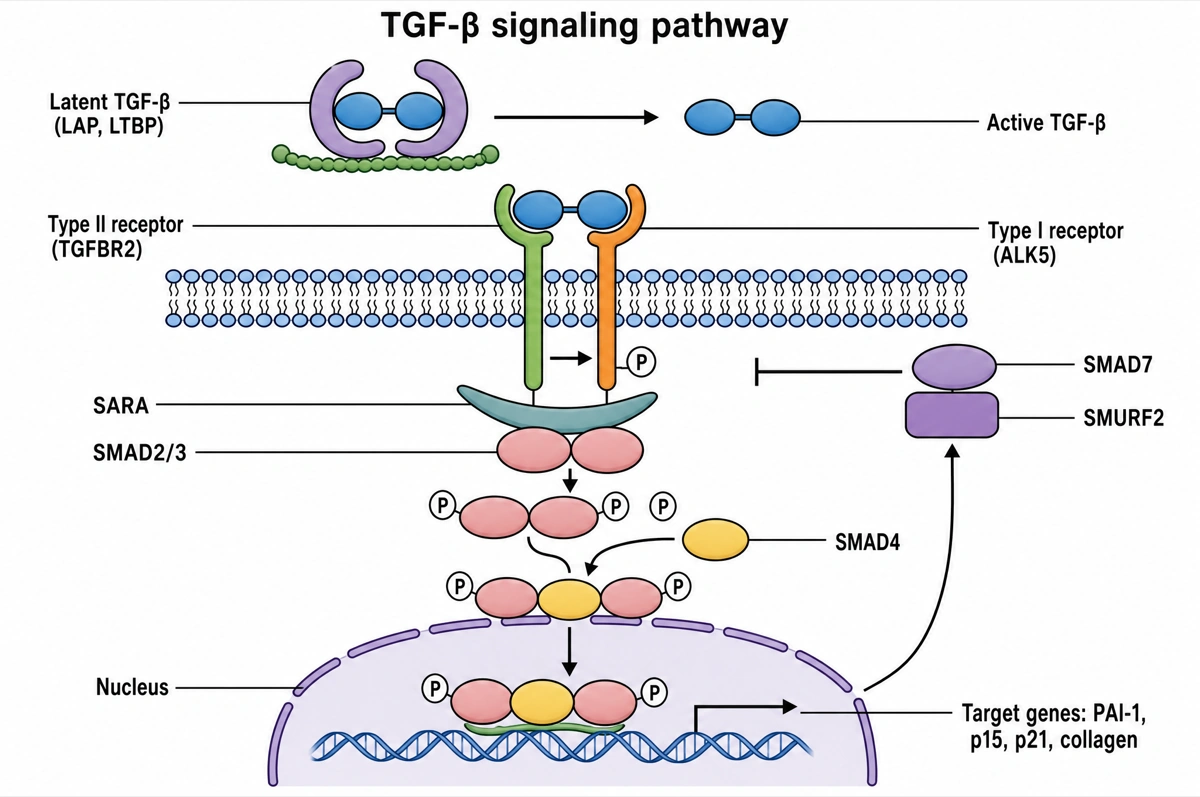
두 키나아제와 SMAD, 그리고 브레이크
위에서 아래로 읽고, 오른쪽을 따라 되먹임으로 올라갑니다.
- 1
잠복형 → 활성 TGF-β
세포 밖에서 LAP·LTBP로부터 활성 TGF-β가 풀려납니다.
- 2
TGFBR2 → ALK5
TGF-β가 붙은 TGFBR2가 제1형 수용체 ALK5를 인산화합니다.
- 3
SARA·SMAD2/3·SMAD4
ALK5가 인산화한 SMAD2/3가 SMAD4와 함께 핵으로 갑니다.
- 4
표적 유전자와 SMAD7
PAI-1·p15·p21·콜라겐이 켜지고, SMAD7이 ALK5를 막습니다.
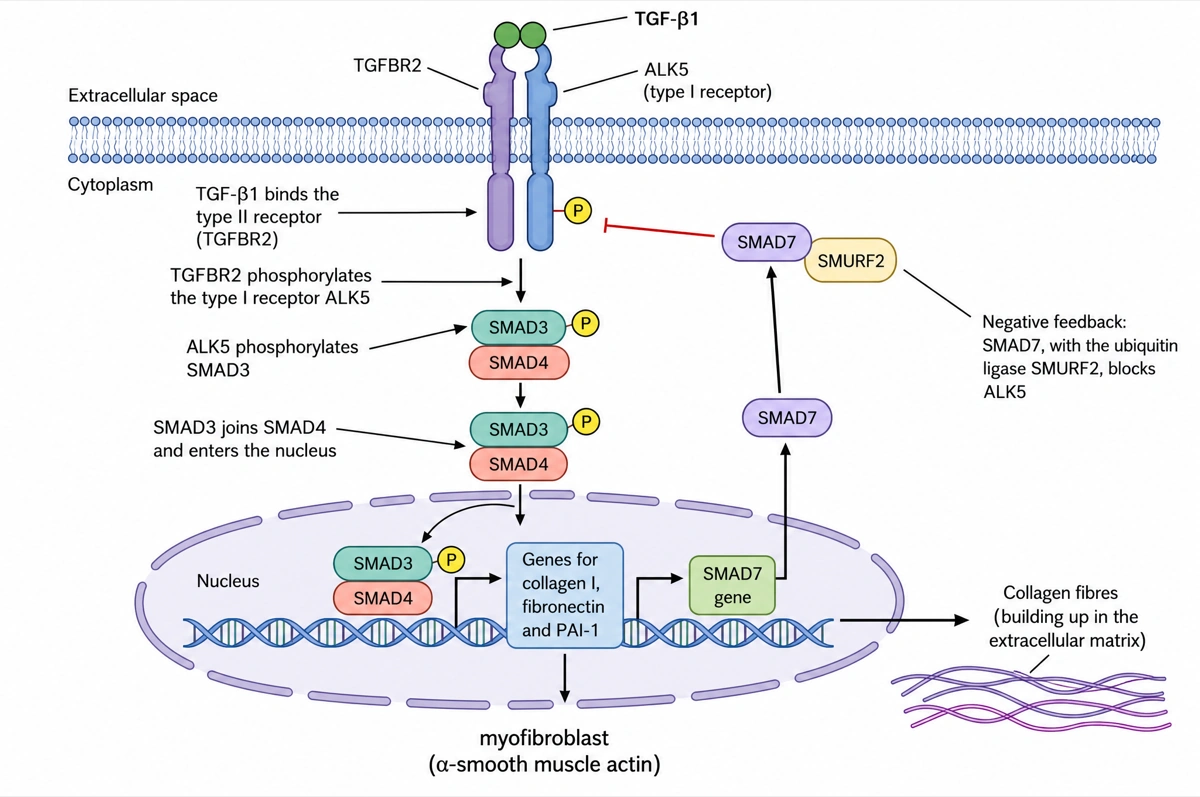
TGF-β1이 섬유화를 몰면 SMAD7이 막는다
가운데를 따라 내려간 뒤 오른쪽 SMAD7 갈래로 올라갑니다.
- 1
TGFBR2 → ALK5 → SMAD3
두 수용체를 거쳐 SMAD3와 SMAD4가 핵으로 들어갑니다.
- 2
유전자 → 근섬유모세포
제1형 콜라겐·피브로넥틴·PAI-1이 켜지고 콜라겐이 쌓입니다.
- 3
SMAD7 되먹임
SMAD7도 유도되어 SMURF2와 함께 ALK5를 막습니다.
SMAD 핵심 경로를 넘어서는 TGF-β 그림
위 그림은 정규 SMAD2/3 경로와 섬유화 프로그램을, 아래 표는 SMAD1/5/8을 쓰는 BMP 가지를 다룹니다. 세포생물학, 종양학, 면역학 논문이 그리는 다른 TGF-β 그림은 다음과 같습니다.
정규·비정규 TGF-β 신호전달
SMAD 가지를 가운데로 내리고, 수용체에서 나오는 가지들을 양옆에 둡니다. 수용체에 결합한 TRAF6가 TAK1을 활성화해 MKK3/6을 거쳐 p38로, MKK4를 거쳐 JNK로 이어지고, ALK5가 ShcA를 인산화하면 ShcA가 Grb2–SOS를 불러 Ras–ERK를 활성화합니다. PI3K는 AKT와 mTORC1을 활성화하고, TGFBR2는 PAR6를 인산화해 SMURF1을 불러 밀착연접의 RhoA를 분해하게 합니다. 이 가지들은 SMAD가 아니라 수용체 복합체에서 나오는 별개의 화살표로 그립니다.
잠복형 TGF-β의 활성화
경로의 세포 밖 절반입니다. 성숙한 이량체는 자신의 프로도메인인 LAP에 싸인 채(소형 잠복 복합체) 남고, LAP에 이황화 결합으로 이어진 LTBP-1이 이를 기질의 피브릴린과 피브로넥틴에 묶어 둡니다. 상피세포의 αvβ6와 αvβ8 인테그린은 TGF-β1과 TGF-β3의 LAP에 있는 RGD 모티프에 결합하며(TGF-β2에는 없음), αvβ6는 고정된 LTBP에 맞서 잡아당겨 사이토카인을 풀어 줍니다. 조절 T세포와 혈소판에서는 LTBP 대신 GARP가 잠복형 TGF-β1을 세포 표면에 붙잡아 둡니다. 유전학도 여기에 들어갑니다. 마르판 증후군의 피브릴린-1 돌연변이와 로이스-디에츠 증후군의 TGFBR1, TGFBR2, SMAD2, SMAD3, TGFB2, TGFB3 돌연변이로, 둘 다 대동맥류를 동반합니다.
TGF-β와 상피-중간엽 전이
상피세포가 중간엽 세포로 바뀌는 과정을 단계별로 그립니다. SMAD3–SMAD4가 짝 전사 인자와 함께 EMT 전사 인자 SNAIL, SLUG(SNAI2), ZEB1/ZEB2, TWIST를 유도하고, 이들이 E-카드헤린(CDH1)을 억제하는 동안 N-카드헤린, 비멘틴, 피브로넥틴은 늘어납니다. 세포는 밀착연접과 정단-기저 극성을 잃고 운동성을 얻습니다. 암 그림에서는 하나의 스위치가 아니라 부분적·혼합 상태를 포함하는 스펙트럼으로 그립니다.
종양 억제자에서 종양 촉진자로
두 단계를 두 칸으로 그립니다. 초기 상피세포에서는 SMAD 복합체가 p15INK4B와 p21을 유도하고 MYC와 ID 유전자를 억제해 세포가 G1에서 멈춥니다. 진행한 암종에서는 세포 증식 억제 가지가 사라지고(미세부수체 불안정 대장암 대부분의 TGFBR2 틀이동 돌연변이, 췌장암 약 절반의 SMAD4 소실), 종양과 기질은 TGF-β를 EMT, 침윤, 혈관신생, 면역 회피에 이용합니다. 유방암 뼈 전이가 대표 예입니다. 뼈에서 풀려난 TGF-β가 암세포의 PTHrP를 유도하고, PTHrP가 파골세포를 움직이며, 흡수되는 뼈가 다시 TGF-β를 내놓습니다.
T세포 분화에서의 TGF-β
면역 사이토카인으로서의 TGF-β입니다. IL-2와 함께 미분화 CD4⁺ T세포를 FOXP3⁺ 조절 T세포로, IL-6 또는 IL-21과 함께 RORγt를 발현하는 Th17 세포로, IL-4와 함께 Th9 세포로 분화시킵니다. 작동 T세포와 NK세포도 억제하며, 종양에서는 T세포를 종양 중심부 밖에 묶어 두는데, 이것이 TGF-β 차단을 PD-1 또는 PD-L1 항체와 병용하는 근거입니다. TGF-β1이 없는 생쥐는 광범위한 염증으로 몇 주 안에 죽습니다.
TGF-β 억제제가 작용하는 자리
약물군마다 해당 단계에 그립니다. 리간드: 세 가지 TGF-β 아이소폼을 모두 중화하는 항체 프레솔리무맙, 그리고 PD-L1 항체에 TGFBR2 세포외 도메인을 융합한 리간드 트랩으로 3상에서 실패한 빈트라퓨스프 알파. 수용체 키나아제: ALK5를 억제하는 갈루니서팁과 박토서팁. 옆에는 내인성 브레이크를 둡니다. 수용체의 SMAD7, SMAD 복합체의 SKI와 SnoN, 기질의 데코린입니다. TGF-β 적응증으로 승인된 약은 없으며, 더 넓은 계열에서 승인된 루스파터셉트와 소타터셉트는 TGF-β가 아니라 액티빈과 GDF를 결합하는 액티빈 수용체 리간드 트랩입니다.
TGF-β 신호전달 경로란?
TGF-β 신호전달 경로는 형질전환 성장인자 베타의 신호를 세포 표면에서 핵으로 전하는 경로로, TGF-β가 제2형 수용체(TGFBR2)에 결합하면 TGFBR2가 제1형 수용체 ALK5(TGFBR1)를 인산화하고, ALK5가 인산화한 SMAD2와 SMAD3가 SMAD4와 복합체를 이루어 핵에 들어가 표적 유전자를 조절합니다. 표적 유전자 가운데 하나인 SMAD7이 다시 수용체를 억제합니다.
핵심 정리
- TGF-β는 잠복형으로 만들어집니다. 퓨린이 전구체를 자르지만 잠복 관련 펩타이드(LAP)가 성숙한 이량체를 감싼 채 남고, LTBP가 이를 세포외 기질에 붙잡아 둡니다. αvβ6·αvβ8 같은 인테그린, 단백질분해효소, 트롬보스폰딘-1, 산성 환경이 활성 사이토카인을 풀어 줍니다.
- 두 수용체는 모두 세린/트레오닌 키나아제입니다. TGF-β는 먼저 TGFBR2에 결합하고, TGFBR2가 TGFBR1(ALK5)을 불러 글리신과 세린이 많은 GS 도메인을 인산화합니다. 활성 복합체에는 제2형과 제1형 수용체가 두 개씩 들어 있습니다.
- SMAD2와 SMAD3가 R-SMAD, SMAD4가 유일한 Co-SMAD입니다. 어댑터 SARA가 SMAD2/3를 ALK5에 건네면 ALK5가 C 말단의 세린 두 개를 인산화하고, 인산화된 R-SMAD는 SMAD4와 복합체를 이루어 핵으로 이동합니다.
- 경로는 스스로 꺼집니다. SMAD2/3–SMAD4 복합체가 SMAD7을 유도하고, SMAD7은 ALK5를 두고 SMAD2/3와 경쟁하면서 유비퀴틴 연결효소 SMURF1, SMURF2, NEDD4L을 수용체로 데려와 분해되게 합니다.
- 같은 신호가 초기 암은 억제하고 진행한 암은 돕습니다. 정상 세포와 전암 세포에서는 p15와 p21을 유도하고 MYC를 억제해 세포 주기를 멈추지만, 진행한 암종에서는 상피-중간엽 전이, 침윤, 전이를 촉진합니다.
TGF-β 신호전달 경로의 구성 요소와 역할
라벨이 달린 TGF-β 경로 그림에 보통 들어가는 분자를 신호가 지나가는 순서대로 정리했습니다. 더 짧은 라벨 목록을 요청하지 않으면 이것이 기본 라벨 목록입니다.
| 구성 요소 | 역할 | 그리는 위치 |
|---|---|---|
| 잠복형 TGF-β 복합체(LAP, LTBP) | 성숙한 TGF-β를 비활성 상태로 두고 세포외 기질에 저장 | 위쪽, 세포 밖 공간 |
| 활성화 인자(인테그린 αvβ6·αvβ8, 단백질분해효소) | LAP에서 활성 TGF-β 이량체를 풀어 줌 | 잠복 복합체 옆 |
| TGF-β 이량체 | 활성 리간드. TGF-β1, TGF-β2, TGF-β3 중 하나 | 막 위, 수용체에 결합한 상태 |
| 제2형 수용체(TGFBR2) | TGF-β와 먼저 결합하고 제1형 수용체를 인산화하는 키나아제 | 막을 관통 |
| 제1형 수용체(ALK5, TGFBR1) | GS 도메인이 인산화되면 켜지는 키나아제. SMAD2와 SMAD3를 인산화 | TGFBR2 옆에서 막을 관통, 동그라미 친 P 표시 |
| SARA | SMAD2/3를 ALK5에 건네는 어댑터 | 막 바로 아래 ALK5 옆(엄밀히는 초기 엔도솜) |
| SMAD2와 SMAD3(R-SMAD) | ALK5가 C 말단 세린 두 개를 인산화하면 떨어져 나감 | 세포질, 각각 동그라미 친 P 표시 |
| SMAD4(Co-SMAD) | SMAD2/3–SMAD4 복합체를 만드는 공통 짝 | 세포질, R-SMAD에 합류하는 모습 |
| 짝 전사 인자 | SP1, FOXO 같은 DNA 결합 짝과 p300 같은 공동활성인자. 조절할 유전자를 고름 | 핵 안의 DNA 위 |
| 표적 유전자 | PAI-1(SERPINE1), p15(CDKN2B), p21(CDKN1A), 콜라겐(COL1A2), JUNB, SMAD7은 켜짐, MYC는 꺼짐 | 핵 안, 그림 맨 아래 |
| SMAD7과 SMURF1/2 | ALK5를 막고 분해되게 하는 억제형 SMAD | 핵에서 ALK5로 돌아가는 끝이 평평한 선 |
자세한 정도는 수업 수준에 따라 다릅니다. 입문은 TGF-β, 두 수용체, SMAD2/3, SMAD4, 표적 유전자를, 세포생물학 강의는 SARA, SMAD7, SMURF를, 심화 강의는 잠복 복합체와 SMAD 비의존 가지(TAK1에서 p38·JNK로, PI3K에서 AKT로)까지 그립니다. 많은 교과서가 SMAD 인산화를 세포막에 그리지만, Reactome은 수용체가 세포 안으로 들어간 뒤의 초기 엔도솜에 둡니다.
TGF-β 신호전달과 BMP 신호전달은 무엇이 다른가요?
TGF-β 경로와 BMP 경로는 제2형 수용체가 제1형 수용체를 인산화하고 R-SMAD와 SMAD4가 신호를 나르는 같은 장치를 쓰지만, TGF-β는 ALK5와 SMAD2/3를, BMP는 ALK2·ALK3·ALK6과 SMAD1/5/8을 씁니다. 둘 다 사람에게 33개 구성원이 있는 TGF-β 계열에 속합니다.
| TGF-β 가지 | BMP 가지 | |
|---|---|---|
| 리간드 | TGF-β1, TGF-β2, TGF-β3(액티빈과 Nodal도 같은 SMAD 사용) | BMP2, BMP4, BMP6, BMP7, GDF5 등 |
| 제2형 수용체 | TGFBR2 | BMPR2, ACVR2A, ACVR2B |
| 제1형 수용체 | ALK5(TGFBR1) | ALK3(BMPR1A), ALK6(BMPR1B), ALK2(ACVR1). BMP9·BMP10에는 ALK1 |
| 결합 순서 | 먼저 제2형 수용체에 결합 | 제1형 수용체에만 결합할 수도 있으며, 두 종류가 함께 있으면 훨씬 강하게 결합 |
| R-SMAD | SMAD2, SMAD3 | SMAD1, SMAD5, SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| 고정 단백질 | SARA | 엔도핀 |
| DNA 서열 | 주로 SMAD 결합 서열(CAGAC) | SMAD 결합 서열과 GC가 풍부한 서열 |
| 세포 밖 조절 | LAP가 TGF-β를 잠복형으로 유지 | Noggin과 Gremlin 1이 BMP를 붙잡음 |
| 주요 역할 | 성장 억제, 세포외 기질, 면역 조절, 섬유화 | 뼈와 연골 형성, 심장·콩팥·혈관 발생 |
두 가지는 수용체 아래에서 SMAD4만 공유하도록 그립니다. 흔한 실수는 ALK5 아래에 SMAD1/5/8을, BMP 수용체 아래에 SMAD2/3를 그리는 것입니다. TGF-β 농도가 높으면 혈관 내피세포에서 ALK1도 쓰이지만, 이는 예외이지 교과서의 기본 그림이 아닙니다.
TGF-β 신호전달 경로에 대한 자주 묻는 질문
라벨이 달린 TGF-β 신호전달 경로 그림에는 무엇이 들어가야 하나요?
표준 구성은 TGF-β, 제2형 수용체(TGFBR2), 인산화된 제1형 수용체 ALK5(TGFBR1), 동그라미 친 P가 붙은 SMAD2와 SMAD3, SMAD4, 핵으로 들어가는 SMAD 복합체, 표적 유전자, 수용체로 되돌아가는 SMAD7입니다. 더 자세한 그림은 잠복 복합체(LAP, LTBP), SARA, SMURF 유비퀴틴 연결효소도 넣습니다.
TGF-β/SMAD 경로는 어떤 단계로 진행되나요?
여섯 단계입니다. 활성 TGF-β가 잠복 복합체에서 풀려나 TGFBR2에 결합하고, TGFBR2가 ALK5를 불러 인산화하고, ALK5가 SMAD2와 SMAD3를 인산화하고, 인산화된 SMAD2/3가 SMAD4와 결합하고, 복합체가 핵에 들어가 짝 전사 인자와 함께 표적 유전자를 조절합니다. 그 결과 만들어진 SMAD7이 다시 수용체를 억제합니다.
TGF-beta와 TGF-β는 같은 것인가요?
같습니다. TGF-beta, TGF-β, TGF-b는 모두 형질전환 성장인자 베타의 표기입니다. 사람에게는 TGF-β1, TGF-β2, TGF-β3 세 가지 동형이 있으며, Reactome 같은 경로 데이터베이스는 TGF-β1을 그립니다.
SMAD7은 무슨 일을 하나요?
SMAD7은 TGF-β 신호를 끄는 억제형 SMAD로, 활성화된 ALK5 수용체에 결합해 SMAD2/3가 붙지 못하게 하고, SMURF1, SMURF2, NEDD4L을 불러 수용체를 유비퀴틴화해 분해되게 합니다. 또 인산가수분해효소 PP1을 데려와 ALK5의 인산기를 떼어 냅니다. SMAD2/3–SMAD4가 SMAD7 유전자를 켜므로 이는 음성 되먹임입니다.
TGF-β의 표적 유전자는 무엇인가요?
모든 세포에 공통인 것은 적으며, 되먹임 조절자인 SMAD7과 SKIL(SnoN)이 주요 예외입니다. 세포에 따라 달라지는 대표적인 표적으로는 PAI-1(SERPINE1), CDK 억제인자 p15(CDKN2B)와 p21(CDKN1A), 제1형 콜라겐(COL1A2), JUNB, SNAIL이 있고, MYC는 억제됩니다.
TGF-β는 왜 종양 억제자이면서 종양 촉진자인가요?
작용이 세포 상태에 따라 달라지기 때문입니다. 정상 세포와 초기 암에서는 p15와 p21을 유도하고 MYC를 억제해 세포 주기를 멈추지만, 이 세포 증식 억제 가지를 잃은 진행 암종은 남은 신호를 상피-중간엽 전이, 침윤, 전이에 씁니다. CDKN2B 소실이나 FOXO 같은 SMAD 짝의 약화가 암이 이 전환을 일으키는 방법 가운데 하나입니다.
TGF-β는 어떻게 섬유화를 일으키나요?
TGF-β 신호가 지나치면 섬유모세포가 근섬유모세포로 바뀌어 콜라겐, 피브로넥틴, PAI-1을 만들고 α-평활근 액틴을 발현하므로 세포외 기질이 쌓입니다. 생쥐에서는 SMAD3를 없애거나 SMAD7을 늘리면 실험적 폐 섬유화가 예방됩니다.
비정규(SMAD 비의존) TGF-β 신호전달이란 무엇인가요?
비정규 신호전달은 같은 수용체가 켜는 SMAD 비의존 가지를 말하며, TRAF 단백질이 TAK1을 활성화해 p38과 JNK로 이어지고, 다른 경로로 ERK, PI3K–AKT, RHO GTP 분해효소, NF-κB가 활성화됩니다. 대부분의 그림은 이를 수용체에서 뻗어 나온 곁가지 하나로 그립니다.
출처
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
더 살펴보기
다른 다이어그램 도구와, 그 배경을 설명한 가이드.