Générateur de schéma de la voie de signalisation du TGF-β
Des schémas de la voie TGF-β : activation du TGF-bêta latent, récepteur de type II et ALK5, SMAD2/3 avec SMAD4 et rétrocontrôle par SMAD7, branches non-SMAD, TEM et cibles thérapeutiques. Conçu pour la recherche sur la fibrose et le cancer.
Exemples de schémas de la voie du TGF-β
Rendus réels de quatre prompts sur la voie du TGF-β : la voie annotée avec le rétrocontrôle SMAD7, une vue d’ensemble à six légendes, la fibrose et une fiche vierge. Un clic charge son prompt pour le modifier.
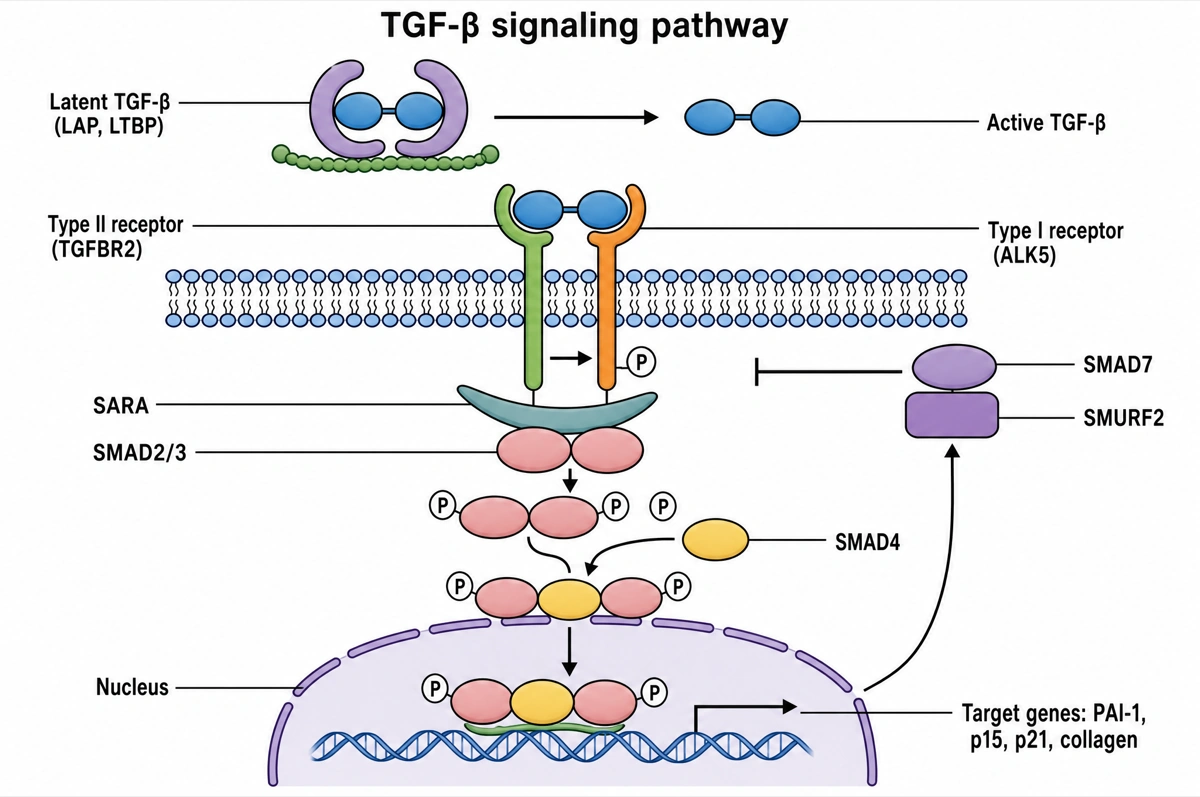
Deux kinases, les SMAD et un frein intégré
De haut en bas, puis on remonte à droite : le rétrocontrôle.
- 1
TGF-β latent → actif
Le TGF-β actif est libéré de LAP et LTBP hors de la cellule.
- 2
TGFBR2 → ALK5
Le TGF-β se fixe à TGFBR2, qui phosphoryle alors le récepteur ALK5.
- 3
SARA, SMAD2/3 et SMAD4
ALK5 phosphoryle SMAD2/3, qui rejoignent SMAD4 et gagnent le noyau.
- 4
Gènes cibles et SMAD7
PAI-1, p15, p21, collagène activés ; SMAD7 et SMURF2 freinent ALK5.
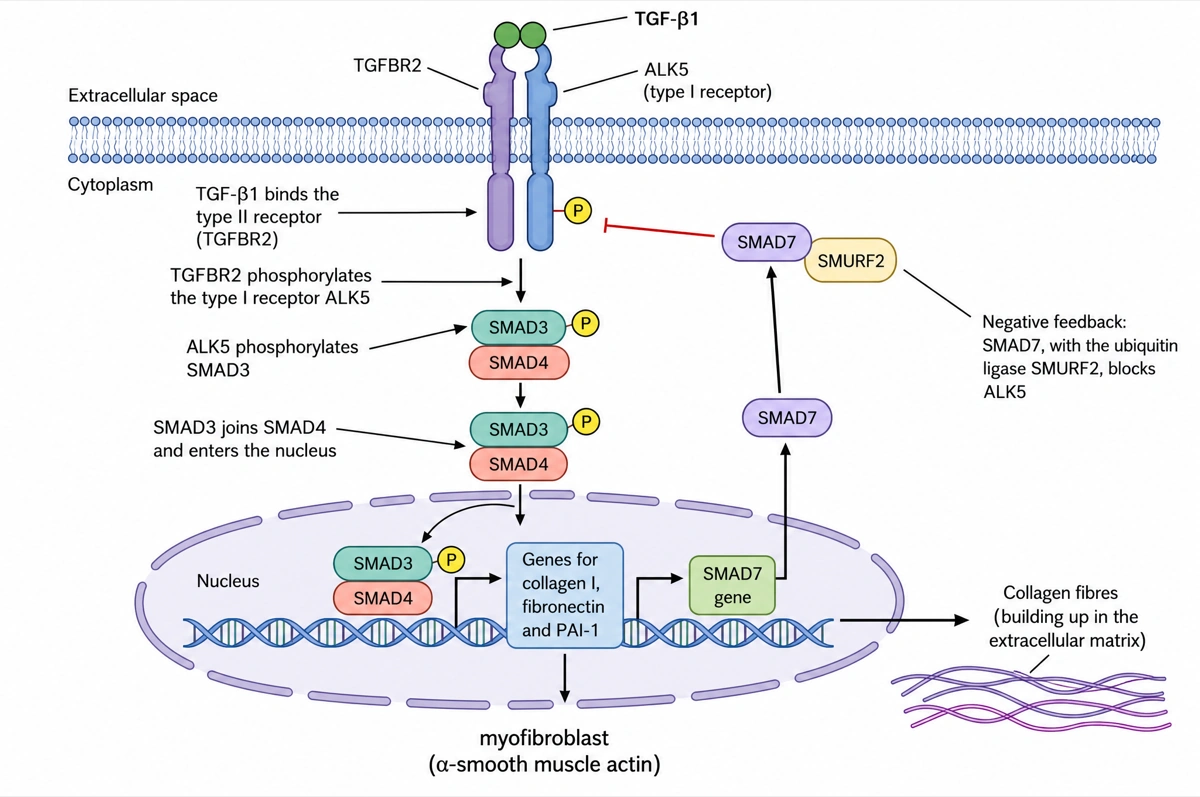
Le TGF-β1 attise la fibrose, SMAD7 freine
On descend par le centre, puis on remonte par SMAD7.
- 1
TGFBR2 → ALK5 → SMAD3
Via les deux récepteurs, SMAD3 et SMAD4 gagnent le noyau.
- 2
Gènes → myofibroblaste
Collagène I, fibronectine, PAI-1 activés ; le collagène s'accumule.
- 3
Rétrocontrôle SMAD7
Le gène SMAD7 est induit aussi ; SMAD7 et SMURF2 bloquent ALK5.
Figures du TGF-β au-delà de la voie SMAD canonique
Les figures ci-dessus montrent la voie canonique SMAD2/3 et son programme fibrosant, et le tableau plus bas couvre la branche BMP avec SMAD1/5/8. Voici les autres figures du TGF-β que dessinent les articles de biologie cellulaire, d'oncologie et d'immunologie.
Signalisation TGF-β canonique et non canonique
La branche SMAD au centre, vers le bas, les branches portées par le récepteur à côté. TRAF6 lié au récepteur active TAK1, qui mène à p38 par MKK3/6 et à JNK par MKK4 ; ALK5 phosphoryle ShcA, qui recrute Grb2–SOS et active Ras–ERK ; la PI3K active Akt et mTORC1 ; et TGFBR2 phosphoryle PAR6, qui recrute SMURF1 pour dégrader RhoA aux jonctions serrées. Dessinez-les comme des flèches distinctes partant du complexe récepteur, et non des SMAD.
Activation du TGF-β latent
La moitié extracellulaire de la voie. Le dimère mature reste enveloppé de son prodomaine, le LAP – c'est le petit complexe latent –, et LTBP-1, relié au LAP par un pont disulfure, l'attache à la fibrilline et à la fibronectine de la matrice. Les intégrines αvβ6 des cellules épithéliales et αvβ8 se lient à un motif RGD du LAP du TGF-β1 et du TGF-β3 (le TGF-β2 n'en a pas) ; αvβ6 libère la cytokine en tirant contre le LTBP ancré. Sur les lymphocytes T régulateurs et les plaquettes, GARP retient le TGF-β1 latent à la surface cellulaire à la place du LTBP. La génétique a aussi sa place ici : mutations de la fibrilline-1 dans le syndrome de Marfan, et de TGFBR1, TGFBR2, SMAD2, SMAD3, TGFB2 et TGFB3 dans le syndrome de Loeys-Dietz, tous deux avec anévrisme aortique.
TGF-β et transition épithélio-mésenchymateuse (TEM)
Une cellule épithéliale qui devient mésenchymateuse, étape par étape. SMAD3–SMAD4 et des facteurs partenaires induisent les facteurs de transcription de la TEM SNAIL, SLUG (SNAI2), ZEB1/ZEB2 et TWIST ; ceux-ci répriment la E-cadhérine (CDH1) tandis que la N-cadhérine, la vimentine et la fibronectine augmentent ; la cellule perd ses jonctions serrées et sa polarité apico-basale et devient mobile. Dans les figures de cancérologie, dessinez la TEM comme un spectre qui inclut des états partiels, hybrides, plutôt que comme un interrupteur unique.
Du suppresseur de tumeur au promoteur tumoral
Deux panneaux pour deux stades. Dans la cellule épithéliale précoce, le complexe SMAD induit p15INK4B et p21 et réprime MYC et les gènes ID, et la cellule s'arrête en G1. Dans le carcinome avancé, le bras cytostatique a disparu – mutations avec décalage du cadre de lecture de TGFBR2 dans la plupart des cancers colorectaux à instabilité microsatellitaire, perte de SMAD4 dans environ la moitié des cancers du pancréas –, tandis que la tumeur et le stroma utilisent le TGF-β pour la TEM, l'invasion, l'angiogenèse et l'échappement immunitaire. Les métastases osseuses du cancer du sein en sont l'exemple type : le TGF-β libéré par l'os induit le PTHrP dans les cellules tumorales, le PTHrP stimule les ostéoclastes, et l'os résorbé libère encore du TGF-β.
Le TGF-β dans la différenciation des lymphocytes T
Le TGF-β comme cytokine immunitaire. Avec l'IL-2, il oriente les lymphocytes T CD4⁺ naïfs vers les lymphocytes T régulateurs FOXP3⁺ ; avec l'IL-6 ou l'IL-21, vers les Th17, qui expriment RORγt ; avec l'IL-4, vers les Th9. Il freine aussi les lymphocytes T effecteurs et les cellules NK, et dans les tumeurs il tient les lymphocytes T à l'écart du cœur tumoral, ce qui justifie d'associer le blocage du TGF-β aux anticorps anti-PD-1 ou anti-PD-L1. Les souris dépourvues de TGF-β1 meurent en quelques semaines d'une inflammation généralisée.
Où agissent les inhibiteurs du TGF-β
Chaque classe à son niveau. Ligand : le fresolimumab, un anticorps qui neutralise les trois isoformes du TGF-β ; le bintrafusp alfa, un anticorps anti-PD-L1 fusionné à l'ectodomaine de TGFBR2 servant de piège à ligand, qui a échoué en phase 3. Kinase du récepteur : le galunisertib et le vactosertib inhibent ALK5. Les freins endogènes se placent à côté : SMAD7 au récepteur, SKI et SnoN sur le complexe SMAD, la décorine dans la matrice. Aucun n'est autorisé dans une indication liée au TGF-β ; le luspatercept et le sotatercept, médicaments autorisés de la famille élargie, sont des pièges à ligands dérivés du récepteur de l'activine, qui fixent les activines et les GDF, pas le TGF-β.
Qu'est-ce que la voie de signalisation du TGF-β ?
La voie de signalisation du TGF-β transmet le signal du facteur de croissance transformant bêta de la surface cellulaire au noyau : le TGF-β se lie au récepteur de type II (TGFBR2), qui phosphoryle le récepteur de type I ALK5 (TGFBR1) ; ALK5 phosphoryle SMAD2 et SMAD3, qui s'associent à SMAD4 et entrent dans le noyau pour réguler des gènes cibles. SMAD7, l'un de ces gènes cibles, freine ensuite le récepteur.
L'essentiel
- Le TGF-β est produit sous forme latente. La furine coupe le précurseur, mais le peptide associé à la latence (LAP) reste enroulé autour du dimère mature et les LTBP l'ancrent dans la matrice extracellulaire ; des intégrines comme αvβ6 et αvβ8, des protéases, la thrombospondine-1 et l'acidité libèrent la cytokine active.
- Les deux récepteurs sont des sérine/thréonine kinases. Le TGF-β se lie d'abord à TGFBR2, qui recrute TGFBR1 (ALK5) et phosphoryle son domaine GS riche en glycine et en sérine ; le complexe actif compte deux récepteurs de type II et deux de type I.
- SMAD2 et SMAD3 sont les R-SMAD ; SMAD4 est le seul co-SMAD. L'adaptateur SARA présente SMAD2/3 à ALK5, qui phosphoryle deux sérines C-terminales ; les R-SMAD phosphorylés forment alors avec SMAD4 un complexe qui migre dans le noyau.
- La voie s'éteint d'elle-même. Le complexe SMAD2/3–SMAD4 induit SMAD7, qui entre en compétition avec SMAD2/3 pour ALK5 et amène au récepteur les ubiquitine ligases SMURF1, SMURF2 et NEDD4L, qui le font dégrader.
- Le même signal freine les tumeurs précoces et favorise les tumeurs avancées. Dans les cellules normales et prénéoplasiques, le TGF-β arrête le cycle cellulaire en induisant p15 et p21 et en réprimant MYC ; dans les carcinomes avancés, il favorise la transition épithélio-mésenchymateuse, l'invasion et les métastases.
Les acteurs de la voie de signalisation du TGF-β et leur rôle
Les molécules qu'un schéma annoté de la voie du TGF-β doit normalement montrer, dans l'ordre où le signal les traverse. C'est le jeu d'annotations par défaut, sauf si vous en demandez un plus court.
| Acteur | Rôle | Où le dessiner |
|---|---|---|
| Complexe latent du TGF-β (LAP, LTBP) | Maintient le TGF-β mature inactif et le stocke dans la matrice extracellulaire | En haut, dans le milieu extracellulaire |
| Activateurs (intégrines αvβ6 et αvβ8, protéases) | Libèrent le dimère de TGF-β actif du LAP | À côté du complexe latent |
| Dimère de TGF-β | Le ligand actif : TGF-β1, TGF-β2 ou TGF-β3 | Au-dessus de la membrane, lié aux récepteurs |
| Récepteur de type II (TGFBR2) | Kinase qui fixe le TGF-β en premier et phosphoryle le récepteur de type I | À travers la membrane |
| Récepteur de type I (ALK5, TGFBR1) | Kinase activée par la phosphorylation de son domaine GS ; phosphoryle SMAD2 et SMAD3 | À travers la membrane à côté de TGFBR2, avec un P cerclé |
| SARA | Adaptateur qui présente SMAD2/3 à ALK5 | Juste sous la membrane, près d'ALK5 (en toute rigueur sur les endosomes précoces) |
| SMAD2 et SMAD3 (R-SMAD) | Phosphorylés par ALK5 sur deux sérines C-terminales, puis libérés | Dans le cytoplasme, chacun avec un P cerclé |
| SMAD4 (co-SMAD) | Partenaire commun qui forme le complexe SMAD2/3–SMAD4 | Dans le cytoplasme, rejoignant les R-SMAD |
| Facteurs de transcription partenaires | Partenaires liant l'ADN comme SP1 et FOXO, et coactivateurs comme p300, qui choisissent les gènes | Sur l'ADN, dans le noyau |
| Gènes cibles | PAI-1 (SERPINE1), p15 (CDKN2B), p21 (CDKN1A), collagène (COL1A2), JUNB et SMAD7 activés ; MYC réprimé | Dans le noyau, en bas du schéma |
| SMAD7 avec SMURF1/2 | SMAD inhibiteur qui bloque ALK5 et le fait dégrader | Barre à extrémité plate du noyau vers ALK5 |
La profondeur dépend du cours. Une première approche montre le TGF-β, les deux récepteurs, SMAD2/3, SMAD4 et les gènes cibles ; un cours de biologie cellulaire ajoute SARA, SMAD7 et les SMURF ; un cours avancé ajoute le complexe latent et les branches non-SMAD (TAK1 vers p38 et JNK, PI3K vers AKT). Beaucoup de manuels dessinent la phosphorylation des SMAD à la membrane plasmique, alors que Reactome la place sur les endosomes précoces après l'internalisation des récepteurs.
Voie du TGF-β ou voie des BMP : quelle différence ?
Les voies du TGF-β et des BMP partagent la même machinerie (un récepteur de type II qui phosphoryle un récepteur de type I, des R-SMAD et SMAD4), mais le TGF-β signale par ALK5 et SMAD2/3, tandis que les BMP passent par ALK2, ALK3 ou ALK6 et SMAD1/5/8. Toutes deux appartiennent à la famille du TGF-β, qui compte 33 membres chez l'être humain.
| Branche TGF-β | Branche BMP | |
|---|---|---|
| Ligands | TGF-β1, TGF-β2, TGF-β3 (l'activine et Nodal utilisent les mêmes SMAD) | BMP2, BMP4, BMP6, BMP7, GDF5 et d'autres |
| Récepteur de type II | TGFBR2 | BMPR2, ACVR2A, ACVR2B |
| Récepteur de type I | ALK5 (TGFBR1) | ALK3 (BMPR1A), ALK6 (BMPR1B), ALK2 (ACVR1) ; ALK1 pour BMP9 et BMP10 |
| Ordre de liaison | Se lie d'abord au récepteur de type II | Peut se lier seul aux récepteurs de type I ; les deux types ensemble lient bien plus fortement |
| R-SMAD | SMAD2, SMAD3 | SMAD1, SMAD5, SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| Protéine d'ancrage | SARA | Endofine |
| Éléments d'ADN | Surtout l'élément de liaison des SMAD (CAGAC) | Éléments riches en GC ainsi que l'élément de liaison des SMAD |
| Contrôle extracellulaire | Le LAP maintient le TGF-β latent | Noggin et Gremlin 1 piègent les BMP |
| Rôles typiques | Arrêt de la prolifération, matrice extracellulaire, régulation immunitaire, fibrose | Formation de l'os et du cartilage ; développement du cœur, du rein et des vaisseaux |
Dessinez les deux branches de sorte qu'elles ne partagent que SMAD4 sous les récepteurs. L'erreur classique consiste à placer SMAD1/5/8 sous ALK5 ou SMAD2/3 sous un récepteur des BMP. À forte concentration, le TGF-β peut aussi engager ALK1 dans les cellules endothéliales, mais c'est une exception, pas la représentation des manuels.
Questions fréquentes sur la voie de signalisation du TGF-β
Que doit contenir un schéma annoté de la voie du TGF-β ?
Le jeu standard comprend le TGF-β, le récepteur de type II (TGFBR2), le récepteur de type I ALK5 (TGFBR1) et sa phosphorylation, SMAD2 et SMAD3 avec un P cerclé, SMAD4, le complexe SMAD qui entre dans le noyau, les gènes cibles et SMAD7 qui rétroagit sur le récepteur. Les figures plus complètes ajoutent le complexe latent (LAP, LTBP), SARA et les ubiquitine ligases SMURF.
Quelles sont les étapes de la voie TGF-β/SMAD ?
Six étapes : le TGF-β actif est libéré de son complexe latent ; il se lie à TGFBR2 ; TGFBR2 recrute et phosphoryle ALK5 ; ALK5 phosphoryle SMAD2 et SMAD3 ; les phospho-SMAD2/3 s'associent à SMAD4 ; le complexe entre dans le noyau et régule les gènes cibles avec des facteurs de transcription partenaires. SMAD7, produit en réponse, freine ensuite le récepteur.
TGF-beta, TGF-bêta et TGF-β : est-ce la même chose ?
Oui : TGF-beta, TGF-bêta, TGF-β et TGF-b désignent tous le facteur de croissance transformant bêta. Le nom recouvre trois isoformes humaines, TGF-β1, TGF-β2 et TGF-β3 ; les bases de données de voies comme Reactome représentent le TGF-β1.
Quel est le rôle de SMAD7 ?
SMAD7 est un SMAD inhibiteur qui éteint la signalisation du TGF-β : il se fixe sur le récepteur ALK5 activé, empêche SMAD2/3 de s'y arrimer et recrute SMURF1, SMURF2 ou NEDD4L, qui ubiquitinent le récepteur en vue de sa dégradation. Il amène aussi la phosphatase PP1, qui retire les phosphates d'ALK5. Comme SMAD2/3–SMAD4 activent le gène SMAD7, il s'agit d'un rétrocontrôle négatif.
Quels sont les gènes cibles du TGF-β ?
Peu sont communs à tous les types cellulaires : les régulateurs de rétrocontrôle SMAD7 et SKIL (SnoN) sont les principales exceptions. Parmi les cibles connues qui dépendent du contexte figurent PAI-1 (SERPINE1), les inhibiteurs de CDK p15 (CDKN2B) et p21 (CDKN1A), le collagène de type I (COL1A2), JUNB et SNAIL, tandis que MYC est réprimé.
Pourquoi le TGF-β est-il à la fois suppresseur et promoteur de tumeur ?
Parce que son effet dépend de la cellule : dans les cellules normales et les tumeurs précoces, le TGF-β arrête le cycle cellulaire en induisant p15 et p21 et en réprimant MYC, mais les carcinomes avancés qui ont perdu ce bras cytostatique utilisent le signal restant pour la transition épithélio-mésenchymateuse, l'invasion et les métastases. La perte de CDKN2B ou l'affaiblissement de partenaires des SMAD comme FOXO sont des façons pour la tumeur d'opérer ce basculement.
Comment le TGF-β provoque-t-il une fibrose ?
Un excès de signalisation TGF-β pousse les fibroblastes à devenir des myofibroblastes qui produisent collagène, fibronectine et PAI-1 et expriment l'actine musculaire lisse α : la matrice extracellulaire s'accumule. Chez la souris, supprimer SMAD3 ou augmenter SMAD7 protège contre la fibrose pulmonaire expérimentale.
Qu'est-ce que la signalisation TGF-β non canonique (non-SMAD) ?
La signalisation non canonique regroupe les branches indépendantes des SMAD que les mêmes récepteurs activent : des protéines TRAF activent TAK1, qui mène à p38 et JNK, et d'autres voies activent ERK, PI3K–AKT, les GTPases RHO et NF-κB. La plupart des figures les dessinent comme une branche latérale partant des récepteurs.
Sources
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
À explorer aussi
Nos autres outils de schémas, et les guides qui vont avec.
Dessinez votre voie de signalisation du TGF-β
D'une ligne de description à un schéma de voie annoté et imprimable en une minute environ.
Commencer à dessiner