
Генератор схем сигнального пути TGF-β
Схемы сигнального пути TGF-β: активация латентного TGF-beta, рецептор II типа и ALK5, SMAD2/3 со SMAD4 и обратная связь SMAD7, а также SMAD-независимые ветви, ЭМП и мишени препаратов. Создано для исследований фиброза и рака.
Примеры схем сигнального пути TGF-β
Реальные рендеры четырёх промптов о сигнальном пути TGF-β: полная схема с обратной связью через SMAD7, общая схема с шестью подписями, фиброз и пустой лист. Щелчок загружает промпт для редактирования.
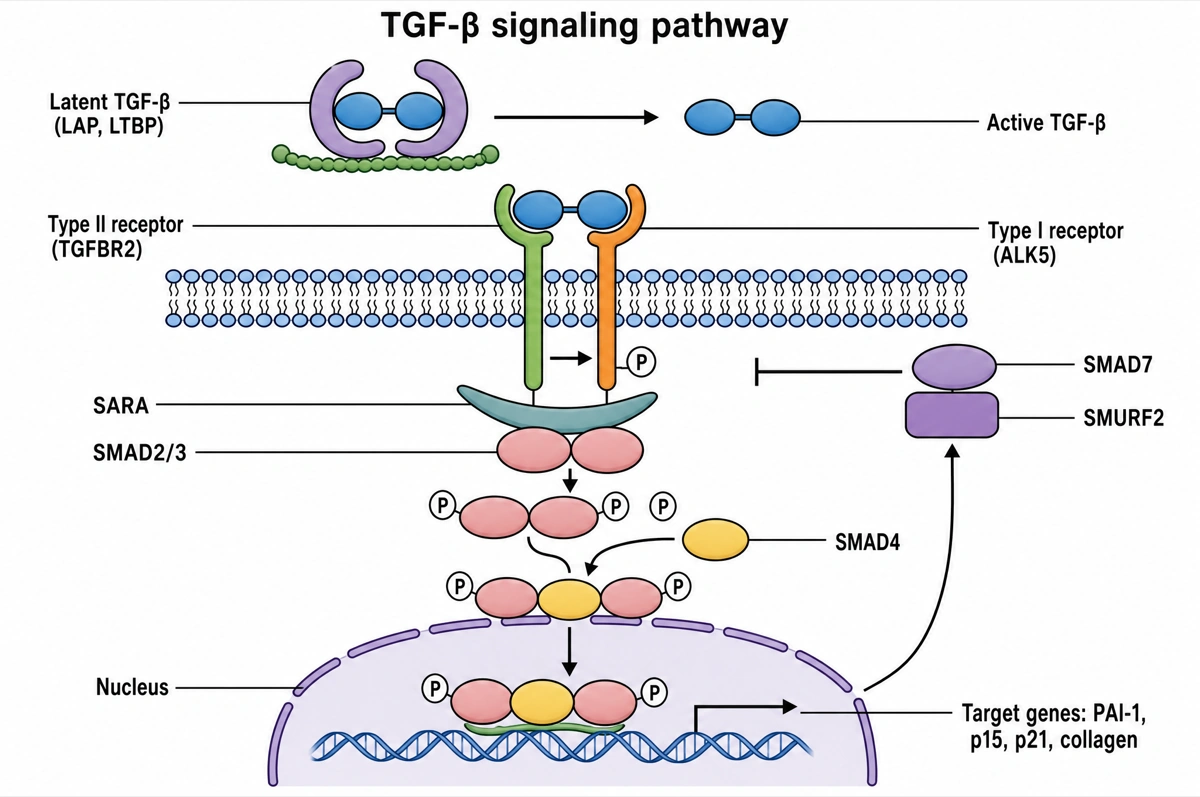
Две киназы, SMAD и встроенный тормоз
Сверху вниз, затем справа вверх — к обратной связи.
- 1
Латентный → активный TGF-β
Вне клетки активный TGF-β освобождается из LAP и LTBP.
- 2
TGFBR2 → ALK5
TGF-β связывает TGFBR2, и тот фосфорилирует рецептор I типа ALK5.
- 3
SARA, SMAD2/3 и SMAD4
ALK5 фосфорилирует SMAD2/3; вместе со SMAD4 они идут в ядро.
- 4
Гены-мишени и SMAD7
PAI-1, p15, p21, коллаген включены; SMAD7 со SMURF2 тормозит ALK5.
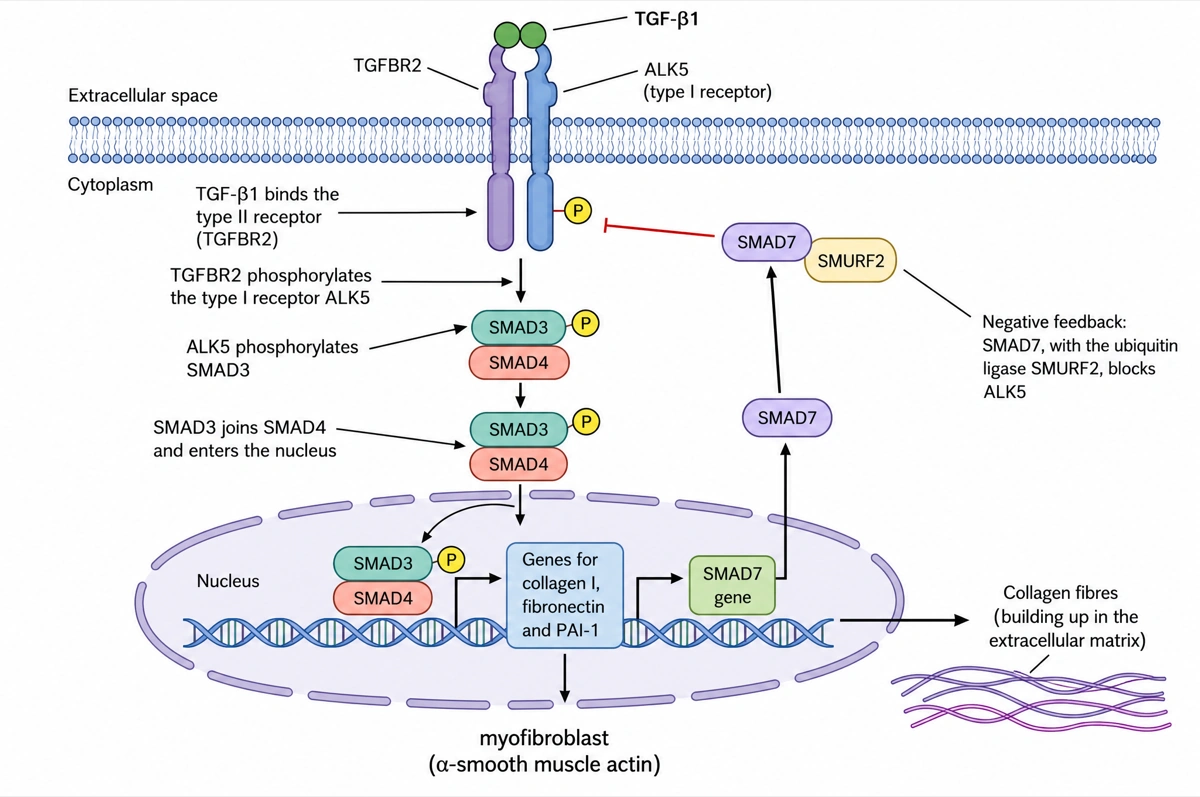
TGF-β1 разгоняет фиброз, SMAD7 тормозит
Вниз по центру, затем вверх по ветви SMAD7 справа.
- 1
TGFBR2 → ALK5 → SMAD3
Через оба рецептора SMAD3 и SMAD4 попадают в ядро.
- 2
Гены → миофибробласт
Включаются коллаген I, фибронектин и PAI-1; коллаген копится.
- 3
Обратная связь SMAD7
Индуцируется и ген SMAD7; SMAD7 со SMURF2 блокирует ALK5.
Схемы TGF-β за пределами канонического пути SMAD
Схемы выше рисуют канонический путь SMAD2/3 и его фиброзную программу, а таблица ниже охватывает ветвь BMP со SMAD1/5/8. Вот другие схемы TGF-β, которые рисуют в статьях по клеточной биологии, онкологии и иммунологии.
Каноническая и неканоническая передача сигнала TGF-β
Ветвь SMAD — по центру, ветви, идущие от рецептора, — по бокам. Связанный с рецептором TRAF6 активирует TAK1, который ведёт через MKK3/6 к p38 и через MKK4 к JNK; ALK5 фосфорилирует ShcA, который привлекает Grb2–SOS и активирует Ras–ERK; PI3K активирует AKT и mTORC1; а TGFBR2 фосфорилирует PAR6, который привлекает SMURF1 для разрушения RhoA в плотных контактах. Рисуйте их отдельными стрелками от рецепторного комплекса, а не от SMAD.
Активация латентного TGF-β
Внеклеточная половина пути. Зрелый димер остаётся обёрнутым в свой продомен LAP — малый латентный комплекс, — а LTBP-1, связанный с LAP дисульфидными связями, привязывает его к фибриллину и фибронектину матрикса. Интегрины αvβ6 эпителиальных клеток и αvβ8 связывают мотив RGD в LAP у TGF-β1 и TGF-β3 (у TGF-β2 его нет); αvβ6 освобождает цитокин, натягивая его против закреплённого LTBP. На регуляторных Т-клетках и тромбоцитах латентный TGF-β1 вместо LTBP удерживает на поверхности клетки GARP. Сюда же ложится генетика: мутации фибриллина-1 при синдроме Марфана и TGFBR1, TGFBR2, SMAD2, SMAD3, TGFB2 и TGFB3 при синдроме Лойса–Дитца, оба с аневризмой аорты.
TGF-β и эпителиально-мезенхимальный переход
Эпителиальная клетка, шаг за шагом становящаяся мезенхимной. SMAD3–SMAD4 с факторами-партнёрами индуцируют транскрипционные факторы ЭМП SNAIL, SLUG (SNAI2), ZEB1/ZEB2 и TWIST; они подавляют E-кадгерин (CDH1), а N-кадгерин, виментин и фибронектин растут; клетка теряет плотные контакты и апикально-базальную полярность и становится подвижной. На онкологических схемах рисуйте его как спектр с частичными, гибридными состояниями, а не как один переключатель.
От опухолевого супрессора к промотору опухоли
Две панели для двух стадий. В ранней эпителиальной клетке комплекс SMAD индуцирует p15INK4B и p21 и подавляет MYC и гены ID, и клетка останавливается в G1. В поздней карциноме цитостатическое звено утрачено — мутации со сдвигом рамки в TGFBR2 при большинстве колоректальных раков с микросателлитной нестабильностью, потеря SMAD4 примерно в половине случаев рака поджелудочной железы, — тогда как опухоль и строма используют TGF-β для ЭМП, инвазии, ангиогенеза и ухода от иммунного ответа. Хрестоматийный пример — костные метастазы рака молочной железы: TGF-β, высвобожденный из кости, индуцирует PTHrP в опухолевых клетках, PTHrP активирует остеокласты, а резорбируемая кость высвобождает ещё больше TGF-β.
TGF-β в дифференцировке Т-клеток
TGF-β как иммунный цитокин. Вместе с IL-2 он направляет наивные CD4⁺ Т-клетки в регуляторные Т-клетки FOXP3⁺; с IL-6 или IL-21 — в клетки Th17, экспрессирующие RORγt; с IL-4 — в клетки Th9. Он также подавляет эффекторные Т-клетки и NK-клетки, а в опухолях не пускает Т-клетки в центр опухоли — на этом основано сочетание блокады TGF-β с антителами к PD-1 или PD-L1. Мыши без TGF-β1 погибают в течение нескольких недель от распространённого воспаления.
Где действуют ингибиторы TGF-β
Каждый класс — на своём уровне. Лиганд: фрезолимумаб, антитело, нейтрализующее все три изоформы TGF-β; бинтрафусп альфа — антитело к PD-L1, слитое с эктодоменом TGFBR2 как ловушка лиганда, — не прошёл фазу 3. Киназа рецептора: галунисертиб и вактосертиб ингибируют ALK5. Рядом стоят эндогенные тормоза: SMAD7 у рецептора, SKI и SnoN на комплексе SMAD, декорин в матриксе. Ни один из них не одобрен по показанию, связанному с TGF-β; луспатерцепт и сотатерцепт, одобренные препараты более широкого семейства, — ловушки лигандов рецепторов активина, которые связывают активины и GDF, а не TGF-β.
Что такое сигнальный путь TGF-β?
Сигнальный путь TGF-β передаёт сигнал трансформирующего фактора роста бета с поверхности клетки в ядро: TGF-β связывает рецептор II типа (TGFBR2), который фосфорилирует рецептор I типа ALK5 (TGFBR1); ALK5 фосфорилирует SMAD2 и SMAD3, они соединяются со SMAD4 и входят в ядро, где регулируют гены-мишени. SMAD7 — один из этих генов — затем снова приглушает рецептор.
Коротко
- TGF-β образуется в латентной форме. Фурин разрезает предшественник, но латентно-ассоциированный пептид (LAP) остаётся обёрнутым вокруг зрелого димера, а белки LTBP закрепляют его во внеклеточном матриксе; интегрины αvβ6 и αvβ8, протеазы, тромбоспондин-1 и кислая среда высвобождают активный цитокин.
- Оба рецептора — серин/треониновые киназы. TGF-β сначала связывает TGFBR2; тот привлекает TGFBR1 (ALK5) и фосфорилирует его богатый глицином и серином GS-домен, а активный комплекс содержит два рецептора II типа и два I типа.
- SMAD2 и SMAD3 — R-SMAD, SMAD4 — единственный co-SMAD. Адаптер SARA подаёт SMAD2/3 к ALK5, который фосфорилирует два серина на их C-конце; фосфорилированные R-SMAD образуют со SMAD4 комплекс, уходящий в ядро.
- Путь сам себя выключает. Комплекс SMAD2/3–SMAD4 индуцирует SMAD7, который конкурирует со SMAD2/3 за ALK5 и приводит к рецептору убиквитинлигазы SMURF1, SMURF2 и NEDD4L, после чего рецептор разрушается.
- Один и тот же сигнал сдерживает ранние опухоли и поддерживает поздние. В нормальных и предраковых клетках TGF-β останавливает клеточный цикл, индуцируя p15 и p21 и подавляя MYC; в запущенных карциномах он запускает эпителиально-мезенхимальный переход, инвазию и метастазирование.
Участники сигнального пути TGF-β и их функции
Молекулы, которые обычно показывает схема пути TGF-β с подписями, в том порядке, в котором через них проходит сигнал. Это набор подписей по умолчанию, если вы не попросите более короткий.
| Участник | Функция | Где рисовать |
|---|---|---|
| Латентный комплекс TGF-β (LAP, LTBP) | Держит зрелый TGF-β неактивным и хранит его во внеклеточном матриксе | Вверху, во внеклеточном пространстве |
| Активаторы (интегрины αvβ6 и αvβ8, протеазы) | Освобождают активный димер TGF-β из LAP | Рядом с латентным комплексом |
| Димер TGF-β | Активный лиганд — TGF-β1, TGF-β2 или TGF-β3 | Над мембраной, связан с рецепторами |
| Рецептор II типа (TGFBR2) | Киназа, которая первой связывает TGF-β и фосфорилирует рецептор I типа | Пронизывает мембрану |
| Рецептор I типа (ALK5, TGFBR1) | Киназа, включаемая фосфорилированием GS-домена; фосфорилирует SMAD2 и SMAD3 | Пронизывает мембрану рядом с TGFBR2, с P в кружке |
| SARA | Адаптер, подающий SMAD2/3 к ALK5 | Сразу под мембраной, рядом с ALK5 (строго говоря, на ранних эндосомах) |
| SMAD2 и SMAD3 (R-SMAD) | Фосфорилируются ALK5 по двум C-концевым серинам и отсоединяются | В цитоплазме, каждый с P в кружке |
| SMAD4 (co-SMAD) | Общий партнёр, образующий комплекс SMAD2/3–SMAD4 | В цитоплазме, присоединяется к R-SMAD |
| Транскрипционные факторы-партнёры | ДНК-связывающие партнёры вроде SP1 и FOXO и коактиваторы вроде p300, выбирающие гены | На ДНК в ядре |
| Гены-мишени | PAI-1 (SERPINE1), p15 (CDKN2B), p21 (CDKN1A), коллаген (COL1A2), JUNB и SMAD7 включаются; MYC выключается | В ядре, в самом низу |
| SMAD7 со SMURF1/2 | Ингибиторный SMAD, блокирующий ALK5 и отправляющий его на деградацию | Линия с плоским концом от ядра обратно к ALK5 |
Глубина зависит от курса. На вводном уровне показывают TGF-β, два рецептора, SMAD2/3, SMAD4 и гены-мишени; курс клеточной биологии добавляет SARA, SMAD7 и SMURF, продвинутые курсы — латентный комплекс и не-SMAD ветви (TAK1 к p38 и JNK, PI3K к AKT). Многие учебники рисуют фосфорилирование SMAD у плазматической мембраны, тогда как Reactome помещает его на ранние эндосомы после интернализации рецепторов.
Путь TGF-β и путь BMP: в чём разница?
Пути TGF-β и BMP используют один механизм — рецептор II типа фосфорилирует рецептор I типа, дальше R-SMAD и SMAD4, — но TGF-β передаёт сигнал через ALK5 и SMAD2/3, а BMP — через ALK2, ALK3 или ALK6 и SMAD1/5/8. Оба относятся к семейству TGF-β, в котором у человека 33 члена.
| Ветвь TGF-β | Ветвь BMP | |
|---|---|---|
| Лиганды | TGF-β1, TGF-β2, TGF-β3 (активин и Nodal используют те же SMAD) | BMP2, BMP4, BMP6, BMP7, GDF5 и другие |
| Рецептор II типа | TGFBR2 | BMPR2, ACVR2A, ACVR2B |
| Рецептор I типа | ALK5 (TGFBR1) | ALK3 (BMPR1A), ALK6 (BMPR1B), ALK2 (ACVR1); ALK1 для BMP9 и BMP10 |
| Порядок связывания | Сначала связывает рецептор II типа | Может связать рецептор I типа сам; оба типа вместе связывают гораздо прочнее |
| R-SMAD | SMAD2, SMAD3 | SMAD1, SMAD5, SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| Якорный белок | SARA | Эндофин |
| Элементы ДНК | В основном SMAD-связывающий элемент (CAGAC) | GC-богатые элементы и SMAD-связывающий элемент |
| Внеклеточный контроль | LAP держит TGF-β в латентной форме | Noggin и гремлин 1 перехватывают BMP |
| Типичные функции | Остановка роста, внеклеточный матрикс, регуляция иммунитета, фиброз | Образование кости и хряща; развитие сердца, почки и сосудов |
Рисуйте две ветви так, чтобы ниже рецепторов у них был общим только SMAD4. Классическая ошибка — SMAD1/5/8 под ALK5 или SMAD2/3 под рецептором BMP. Высокие концентрации TGF-β могут задействовать и ALK1 в эндотелиальных клетках, но это исключение, а не учебная схема.
Частые вопросы о сигнальном пути TGF-β
Что должно быть на схеме сигнального пути TGF-β с подписями?
Стандартный набор — TGF-β, рецептор II типа (TGFBR2), рецептор I типа ALK5 (TGFBR1) с его фосфорилированием, SMAD2 и SMAD3 с P в кружке, SMAD4, SMAD-комплекс на пути в ядро, гены-мишени и SMAD7 как обратная связь к рецептору. Более полные рисунки добавляют латентный комплекс (LAP, LTBP), SARA и убиквитинлигазы SMURF.
Из каких этапов состоит путь TGF-β/SMAD?
Шесть этапов: активный TGF-β освобождается из латентного комплекса; он связывает TGFBR2; TGFBR2 привлекает и фосфорилирует ALK5; ALK5 фосфорилирует SMAD2 и SMAD3; фосфо-SMAD2/3 соединяются со SMAD4; комплекс входит в ядро и вместе с транскрипционными факторами-партнёрами регулирует гены-мишени. Образовавшийся в ответ SMAD7 затем приглушает рецептор.
TGF-beta и TGF-β — это одно и то же?
Да — TGF-beta, TGF-β и TGF-b — три написания названия трансформирующего фактора роста бета. Под ним понимают три изоформы человека, TGF-β1, TGF-β2 и TGF-β3; базы данных путей, например Reactome, изображают TGF-β1.
Что делает SMAD7?
SMAD7 — ингибиторный SMAD, выключающий сигнал TGF-β: он связывает активированный рецептор ALK5, не пускает к нему SMAD2/3 и привлекает SMURF1, SMURF2 или NEDD4L, которые убиквитинируют рецептор для деградации. Кроме того, он приводит фосфатазу PP1, снимающую фосфаты с ALK5. Поскольку SMAD2/3–SMAD4 включают ген SMAD7, это петля отрицательной обратной связи.
Какие гены-мишени у TGF-β?
Общих для всех типов клеток немного — главные исключения составляют регуляторы обратной связи SMAD7 и SKIL (SnoN). Известные мишени, зависящие от типа клетки, — PAI-1 (SERPINE1), ингибиторы CDK p15 (CDKN2B) и p21 (CDKN1A), коллаген I типа (COL1A2), JUNB и SNAIL, тогда как MYC подавляется.
Почему TGF-β одновременно опухолевый супрессор и промотор?
Потому что эффект зависит от клетки: в нормальных клетках и на ранних стадиях опухоли TGF-β останавливает клеточный цикл, индуцируя p15 и p21 и подавляя MYC, а запущенные карциномы, утратившие эту цитостатическую ветвь, используют оставшийся сигнал для эпителиально-мезенхимального перехода, инвазии и метастазирования. Потеря CDKN2B или ослабление партнёров SMAD вроде FOXO — пути, которыми опухоль совершает этот переход.
Как TGF-β вызывает фиброз?
Избыточный сигнал TGF-β превращает фибробласты в миофибробласты, которые производят коллаген, фибронектин и PAI-1 и экспрессируют α-гладкомышечный актин, — внеклеточный матрикс накапливается. У мышей удаление SMAD3 или повышение SMAD7 защищает от экспериментального фиброза лёгких.
Что такое неканоническая (не-SMAD) передача сигнала TGF-β?
Неканоническая передача сигнала — это SMAD-независимые ветви, которые включают те же рецепторы: белки TRAF активируют TAK1, ведущий к p38 и JNK, а другие пути активируют ERK, PI3K–AKT, ГТФазы RHO и NF-κB. На большинстве рисунков их показывают одной боковой ветвью от рецепторов.
Источники
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
Продолжить изучение
Другие наши инструменты для схем и руководства к ним.

Нарисуйте сигнальный путь TGF-β
От одной строки описания до подписанной схемы пути, готовой к печати, — около минуты.
Начать