TGF-β訊息傳遞路徑示意圖產生器
繪製 TGF-β 訊息傳遞路徑示意圖:潛伏型 TGF-β 的活化、第二型受體和 ALK5、SMAD2/3 與 SMAD4 及 SMAD7 回饋,另含非 SMAD 分支、EMT 和藥物標靶。為纖維化和癌症研究打造。
TGF-β訊息傳遞路徑示意圖範例
以下是四則TGF-β路徑提示詞的實際生成圖:含SMAD7負回饋的全標註路徑、六個標註的簡明概覽、纖維化路徑和空白學習單。點選即可載入提示詞並修改。
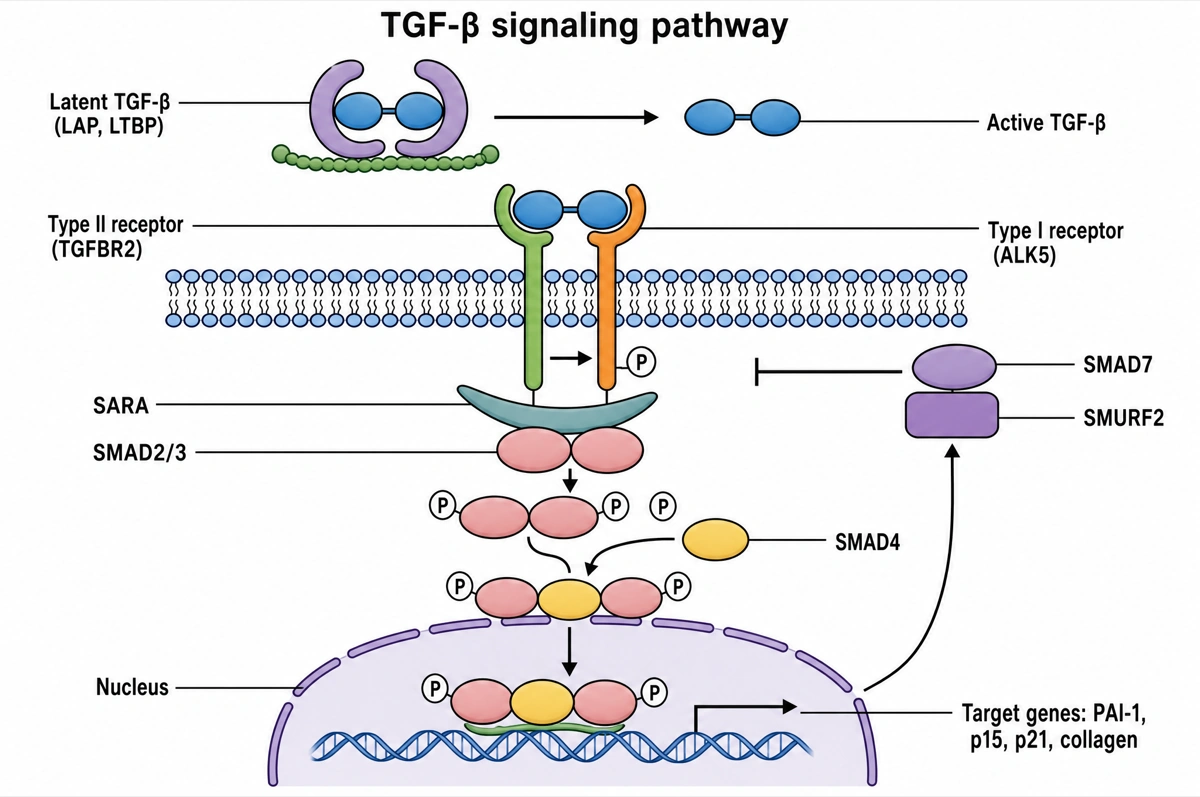
兩個激酶、一組SMAD,外加一道煞車
從上往下讀,再沿右側往上看負回饋。
- 1
潛伏型 → 活性TGF-β
活性TGF-β在細胞外從LAP、LTBP中釋放出來。
- 2
TGFBR2 → ALK5
TGF-β結合TGFBR2,後者磷酸化I型受體ALK5。
- 3
SARA、SMAD2/3、SMAD4
ALK5磷酸化SMAD2/3,後者與SMAD4結合並入核。
- 4
標的基因與SMAD7
PAI-1、p15、p21、膠原蛋白啟動,SMAD7阻斷ALK5。
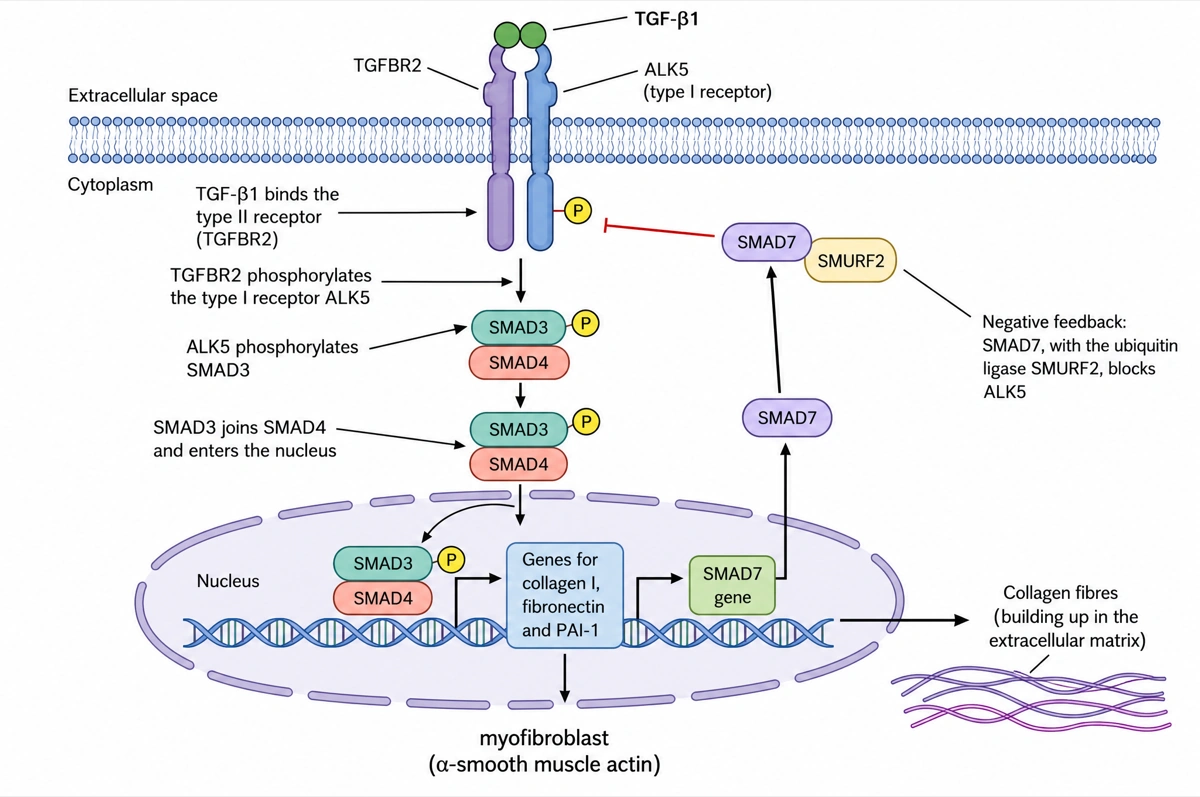
TGF-β1推動纖維化,SMAD7踩下煞車
沿中間往下讀,再沿右側SMAD7支路往上。
- 1
TGFBR2 → ALK5 → SMAD3
經兩個受體傳遞後,SMAD3與SMAD4進入細胞核。
- 2
基因 → 肌纖維母細胞
第一型膠原蛋白、纖網蛋白、PAI-1啟動,膠原纖維堆積。
- 3
SMAD7負回饋
SMAD7基因也被誘導,SMAD7與SMURF2阻斷ALK5。
超越SMAD核心路徑的TGF-β圖
上方的圖畫出典型的SMAD2/3路徑與它的纖維化程序,下方表格涵蓋使用SMAD1/5/8的BMP分支。以下是細胞生物學、腫瘤學與免疫學論文常畫的其他TGF-β圖。
典型與非典型TGF-β訊息傳遞
SMAD分支畫在中間,由受體驅動的分支畫在旁邊。與受體結合的TRAF6活化TAK1,經MKK3/6通往p38,經MKK4通往JNK;ALK5磷酸化ShcA,招募Grb2–SOS並活化Ras–ERK;PI3K活化AKT與mTORC1;TGFBR2磷酸化PAR6,招募SMURF1在緊密連接處分解RhoA。這些都要畫成從受體複合體出發的獨立箭頭,而不是從SMAD出發。
潛伏型TGF-β的活化
這是路徑在細胞外的那一半。成熟二聚體仍被自己的前區段LAP包住,構成小型潛伏複合體;以雙硫鍵與LAP相連的LTBP-1再把它繫在基質中的原纖維蛋白與纖維連接蛋白上。上皮細胞上的整合素αvβ6與αvβ8會結合TGF-β1與TGF-β3的LAP上的RGD序列(TGF-β2沒有);αvβ6靠著拉扯被錨定的LTBP釋出細胞激素。在調節性T細胞與血小板上,由GARP取代LTBP,把潛伏型TGF-β1固定在細胞表面。遺傳學也放在這裡:馬凡氏症候群的原纖維蛋白-1突變,以及Loeys–Dietz症候群的TGFBR1、TGFBR2、SMAD2、SMAD3、TGFB2、TGFB3突變,兩者都會造成主動脈瘤。
TGF-β與上皮-間質轉化
一步步畫出上皮細胞轉變為間質細胞的過程。SMAD3–SMAD4與搭檔因子一起誘導EMT轉錄因子SNAIL、SLUG(SNAI2)、ZEB1/ZEB2與TWIST;它們抑制E-鈣黏蛋白(CDH1),同時N-鈣黏蛋白、波形蛋白與纖維連接蛋白增加;細胞失去緊密連接與頂-基極性,開始能夠移動。在癌症的圖中,要把它畫成包含部分、混合狀態的連續光譜,而不是單一開關。
從抑癌因子到促癌因子
兩個階段,兩個面板。在早期的上皮細胞中,SMAD複合體誘導p15INK4B與p21,抑制MYC與ID基因,細胞停在G1期。在晚期的癌中,抑制增殖的分支已經消失(多數微衛星不穩定的大腸直腸癌帶有TGFBR2移碼突變,約半數胰臟癌失去SMAD4),腫瘤與基質則利用TGF-β進行上皮-間質轉化、侵襲、血管新生與免疫逃脫。乳癌骨轉移是現成的例子:從骨釋出的TGF-β誘導腫瘤細胞產生PTHrP,PTHrP驅動蝕骨細胞,被吸收的骨又釋出更多TGF-β。
T細胞分化中的TGF-β
把TGF-β當作免疫細胞激素來畫。它與IL-2一起讓原始CD4⁺ T細胞分化為FOXP3⁺調節性T細胞;與IL-6或IL-21一起分化為表現RORγt的Th17細胞;與IL-4一起分化為Th9細胞。它也抑制效應T細胞與NK細胞,在腫瘤中把T細胞擋在腫瘤核心之外,這正是TGF-β阻斷與PD-1或PD-L1抗體合併使用的理由。缺少TGF-β1的小鼠會在數週內死於全身性發炎。
TGF-β抑制劑的作用位置
每一類畫在自己的層次。配體:fresolimumab,一種能中和三種TGF-β亞型的抗體;bintrafusp alfa,把TGFBR2胞外區段接在PD-L1抗體上作為配體陷阱,已在第三期試驗失敗。受體激酶:galunisertib與vactosertib抑制ALK5。旁邊放上內源性煞車:受體處的SMAD7、SMAD複合體上的SKI與SnoN,以及基質中的核心蛋白聚醣(decorin)。目前沒有藥物以TGF-β適應症獲得核准;同一大家族中已核准的luspatercept與sotatercept是活化素受體型的配體陷阱,結合的是活化素與GDF,不是TGF-β。
什麼是TGF-β訊息傳遞路徑?
TGF-β訊息傳遞路徑把轉化生長因子β的訊息從細胞表面傳到細胞核:TGF-β結合II型受體(TGFBR2),TGFBR2磷酸化I型受體ALK5(TGFBR1),ALK5再磷酸化SMAD2與SMAD3,它們與SMAD4結合後進入細胞核,調控標的基因。標的基因之一SMAD7又會回過頭抑制受體。
重點
- TGF-β以潛伏形式合成。弗林蛋白酶切開前驅物,但潛伏相關胜肽(LAP)仍包覆著成熟二聚體,LTBP再把它錨定在細胞外基質中;αvβ6、αvβ8等整合素、蛋白酶、血小板反應蛋白-1與酸性環境可釋出活性細胞激素。
- 兩種受體都是絲胺酸/蘇胺酸激酶。TGF-β先結合TGFBR2;TGFBR2招募TGFBR1(ALK5)並磷酸化其富含甘胺酸與絲胺酸的GS區段,活性複合體含兩個II型受體與兩個I型受體。
- SMAD2與SMAD3是R-SMAD,SMAD4是唯一的Co-SMAD。轉接蛋白SARA把SMAD2/3遞給ALK5,ALK5磷酸化其C端的兩個絲胺酸;磷酸化的R-SMAD隨後與SMAD4形成複合體進入細胞核。
- 這條路徑會自我關閉。SMAD2/3–SMAD4複合體誘導SMAD7表現,SMAD7與SMAD2/3競爭結合ALK5,並把泛素連接酶SMURF1、SMURF2與NEDD4L帶到受體上,使受體被分解。
- 同一訊息抑制早期腫瘤、卻促進晚期腫瘤。在正常細胞與癌前細胞中,TGF-β誘導p15與p21、抑制MYC,使細胞週期停滯;在晚期癌中,它推動上皮-間質轉化、侵襲與轉移。
TGF-β訊息傳遞路徑的組成與功能
帶標註的TGF-β路徑圖通常要畫出的分子,依訊息經過的先後排列。除非你要求更精簡的標註,這就是預設的標註組。
| 組成 | 功能 | 畫在哪裡 |
|---|---|---|
| 潛伏型TGF-β複合體(LAP、LTBP) | 讓成熟TGF-β保持無活性,並儲存在細胞外基質中 | 頂部,細胞外 |
| 活化因子(整合素αvβ6、αvβ8,蛋白酶) | 把活性TGF-β二聚體從LAP中釋放出來 | 潛伏複合體旁邊 |
| TGF-β二聚體 | 活性配體:TGF-β1、TGF-β2或TGF-β3 | 細胞膜上方,與受體結合 |
| II型受體(TGFBR2) | 先與TGF-β結合並磷酸化I型受體的激酶 | 貫穿細胞膜 |
| I型受體(ALK5,TGFBR1) | GS區段被磷酸化後活化的激酶,磷酸化SMAD2與SMAD3 | 在TGFBR2旁貫穿細胞膜,標一個圓圈P |
| SARA | 把SMAD2/3遞給ALK5的轉接蛋白 | 緊貼膜下、ALK5旁邊(嚴格來說在早期內體上) |
| SMAD2與SMAD3(R-SMAD) | 被ALK5於C端兩個絲胺酸上磷酸化後脫離 | 細胞質中,各標一個圓圈P |
| SMAD4(Co-SMAD) | 共同搭檔,形成SMAD2/3–SMAD4複合體 | 細胞質中,正與R-SMAD結合 |
| 搭檔轉錄因子 | SP1、FOXO等DNA結合搭檔與p300等共活化因子,決定調控哪些基因 | 細胞核內的DNA上 |
| 標的基因 | PAI-1(SERPINE1)、p15(CDKN2B)、p21(CDKN1A)、膠原蛋白(COL1A2)、JUNB與SMAD7被啟動,MYC被關閉 | 細胞核內,圖的最底部 |
| SMAD7與SMURF1/2 | 抑制性SMAD,阻斷ALK5並使其分解 | 從細胞核回到ALK5的平頭線 |
要畫多詳細,取決於課程層次。入門畫TGF-β、兩種受體、SMAD2/3、SMAD4與標的基因;細胞生物學課程加上SARA、SMAD7與SMURF;進階課程再加潛伏複合體與非SMAD分支(TAK1到p38與JNK,PI3K到AKT)。許多教科書把SMAD磷酸化畫在細胞膜處,而Reactome把它放在受體內吞後的早期內體上。
TGF-β訊息傳遞與BMP訊息傳遞有什麼不同?
TGF-β路徑與BMP路徑使用同一套機制(II型受體磷酸化I型受體,再由R-SMAD與SMAD4傳遞訊息),但TGF-β經由ALK5與SMAD2/3,BMP則經由ALK2、ALK3或ALK6與SMAD1/5/8。兩者都屬於TGF-β家族,人類共有33個成員。
| TGF-β分支 | BMP分支 | |
|---|---|---|
| 配體 | TGF-β1、TGF-β2、TGF-β3(活化素與Nodal也用同樣的SMAD) | BMP2、BMP4、BMP6、BMP7、GDF5等 |
| II型受體 | TGFBR2 | BMPR2、ACVR2A、ACVR2B |
| I型受體 | ALK5(TGFBR1) | ALK3(BMPR1A)、ALK6(BMPR1B)、ALK2(ACVR1);BMP9與BMP10用ALK1 |
| 結合順序 | 先結合II型受體 | 可單獨結合I型受體;兩型受體同時存在時結合強得多 |
| R-SMAD | SMAD2、SMAD3 | SMAD1、SMAD5、SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| 錨定蛋白 | SARA | Endofin |
| DNA序列 | 主要是SMAD結合序列(CAGAC) | SMAD結合序列之外還有富含GC的序列 |
| 胞外調控 | LAP讓TGF-β保持潛伏 | Noggin與Gremlin 1捕捉BMP |
| 典型功能 | 抑制生長、細胞外基質、免疫調節、纖維化 | 骨與軟骨形成;心臟、腎臟與血管發育 |
畫圖時讓兩個分支在受體以下只共用SMAD4。常見錯誤是把SMAD1/5/8畫在ALK5下面,或把SMAD2/3畫在BMP受體下面。高濃度TGF-β在血管內皮細胞中也能動用ALK1,但這是例外,不是教科書的標準畫法。
關於TGF-β訊息傳遞路徑的常見問題
帶標註的TGF-β訊息傳遞路徑圖應該包含哪些內容?
標準內容包括TGF-β、II型受體(TGFBR2)、被磷酸化的I型受體ALK5(TGFBR1)、標有圓圈P的SMAD2與SMAD3、SMAD4、進入細胞核的SMAD複合體、標的基因,以及回到受體的SMAD7。更完整的圖還會加上潛伏複合體(LAP、LTBP)、SARA與SMURF泛素連接酶。
TGF-β/SMAD路徑分成哪幾步?
分六步:活性TGF-β從潛伏複合體中釋出;它結合TGFBR2;TGFBR2招募並磷酸化ALK5;ALK5磷酸化SMAD2與SMAD3;磷酸化的SMAD2/3與SMAD4結合;複合體進入細胞核,與搭檔轉錄因子一起調控標的基因。隨後產生的SMAD7再把受體壓下來。
TGF-beta和TGF-β是同一個東西嗎?
是的。TGF-beta、TGF-β與TGF-b都是轉化生長因子β的寫法。這個名稱涵蓋人類的三種亞型TGF-β1、TGF-β2與TGF-β3;Reactome等路徑資料庫畫的是TGF-β1。
SMAD7有什麼作用?
SMAD7是關閉TGF-β訊息的抑制性SMAD:它結合活化的ALK5受體,阻止SMAD2/3停靠,並招募SMURF1、SMURF2或NEDD4L替受體加上泛素,使其分解。它還會帶來磷酸酶PP1,移除ALK5上的磷酸根。由於SMAD2/3–SMAD4會啟動SMAD7基因,這是一條負回饋環。
TGF-β的標的基因有哪些?
所有細胞類型共有的標的基因很少,負回饋調節因子SMAD7與SKIL(SnoN)是主要的例外。常見、因細胞而異的標的基因包括PAI-1(SERPINE1)、CDK抑制因子p15(CDKN2B)與p21(CDKN1A)、第一型膠原蛋白(COL1A2)、JUNB與SNAIL,而MYC被抑制。
為什麼TGF-β既能抑癌又能促癌?
因為作用取決於細胞狀態:在正常細胞與早期腫瘤中,TGF-β誘導p15與p21、抑制MYC,使細胞週期停滯;但失去這條抑制增殖分支的晚期癌,會把剩下的訊息用於上皮-間質轉化、侵襲與轉移。CDKN2B缺失或FOXO等SMAD搭檔減弱,都是腫瘤完成這一轉變的途徑。
TGF-β如何引起纖維化?
TGF-β訊息過強時,纖維母細胞轉變為肌纖維母細胞,產生膠原蛋白、纖網蛋白與PAI-1並表現α-平滑肌肌動蛋白,細胞外基質隨之堆積。在小鼠中,剔除SMAD3或提高SMAD7都能預防實驗性肺纖維化。
什麼是非典型(非SMAD)TGF-β訊息傳遞?
非典型訊息傳遞是同一組受體啟動、不依賴SMAD的分支:TRAF蛋白活化TAK1,進而通往p38與JNK,另外還有活化ERK、PI3K–AKT、RHO GTP酶與NF-κB的途徑。大多數圖把它們畫成從受體伸出的一條側支。
資料來源
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
繼續探索
我們的其他圖表工具,以及相關的指南文章。