TGF-β信号通路示意图生成器
绘制 TGF-β 信号通路示意图:潜伏型 TGF-β 的激活、II 型受体和 ALK5、SMAD2/3 与 SMAD4 及 SMAD7 反馈,另含非 SMAD 分支、EMT 和药物靶点。为纤维化和肿瘤研究打造。
TGF-β信号通路示意图示例
以下是四条TGF-β通路提示词的实际生成图:含SMAD7负反馈的全标注通路、六个标注的简明概览、纤维化通路和空白填图版。点击即可载入提示词并修改。
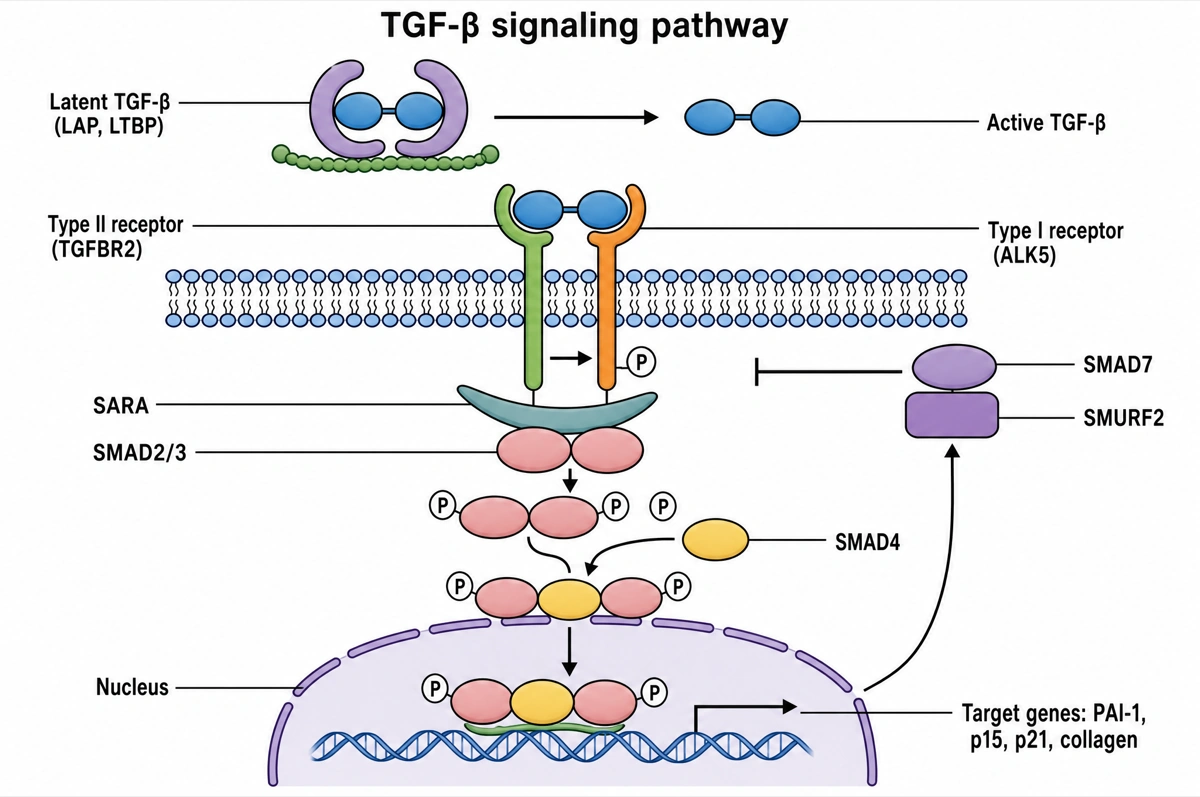
两个激酶、一组SMAD,外加一道刹车
从上往下读,再沿右侧往上看负反馈。
- 1
潜伏型 → 活性TGF-β
活性TGF-β在细胞外从LAP、LTBP中释放出来。
- 2
TGFBR2 → ALK5
TGF-β结合TGFBR2,后者磷酸化I型受体ALK5。
- 3
SARA、SMAD2/3、SMAD4
ALK5磷酸化SMAD2/3,后者与SMAD4结合并入核。
- 4
靶基因与SMAD7
PAI-1、p15、p21、胶原启动,SMAD7阻断ALK5。
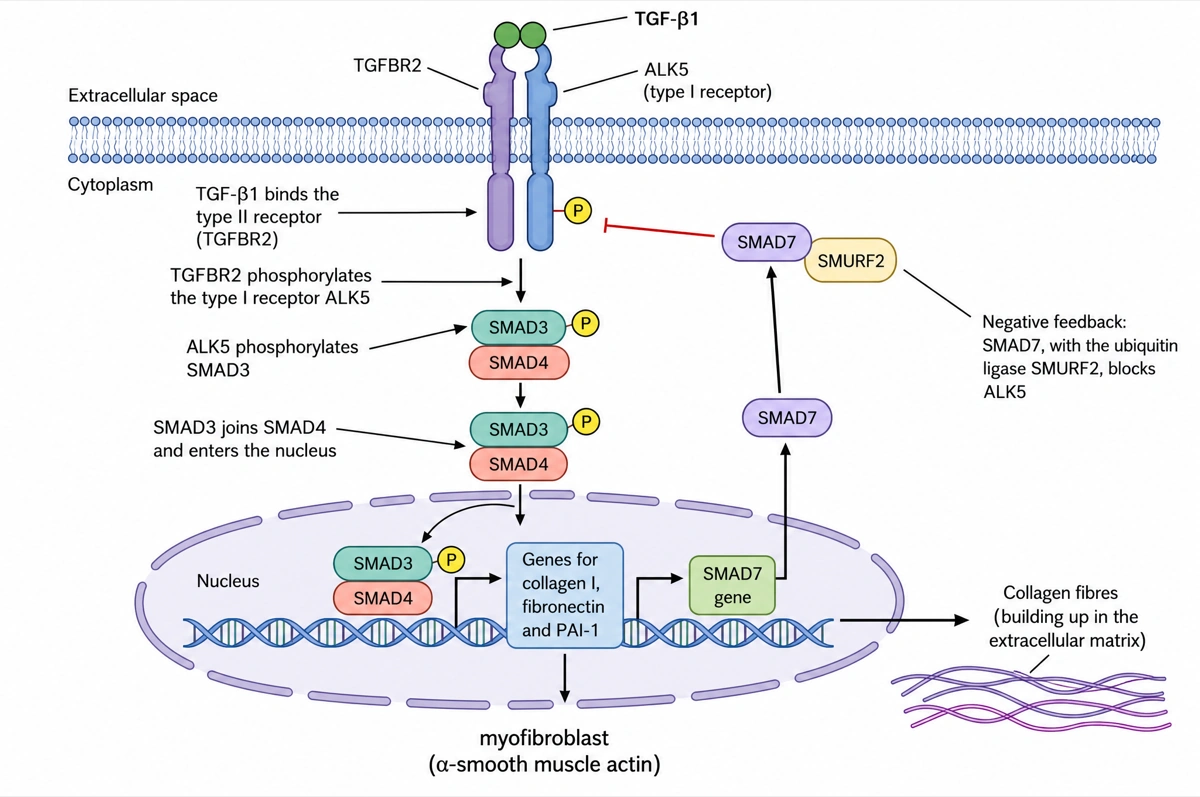
TGF-β1推动纤维化,SMAD7踩下刹车
沿中间往下读,再沿右侧SMAD7支路往上。
- 1
TGFBR2 → ALK5 → SMAD3
经两个受体传递后,SMAD3与SMAD4进入细胞核。
- 2
基因 → 肌成纤维细胞
I型胶原、纤连蛋白、PAI-1启动,胶原纤维不断堆积。
- 3
SMAD7负反馈
SMAD7基因也被诱导,SMAD7与SMURF2阻断ALK5。
超出SMAD核心通路的TGF-β示意图
上面的图画出经典的SMAD2/3通路及其纤维化程序,下面的表格涵盖使用SMAD1/5/8的BMP分支。以下是细胞生物学、肿瘤学和免疫学论文常画的其他TGF-β图。
经典与非经典TGF-β信号
SMAD分支画在中间,由受体驱动的分支画在旁边。与受体结合的TRAF6激活TAK1,经MKK3/6通向p38,经MKK4通向JNK;ALK5磷酸化ShcA,募集Grb2–SOS并激活Ras–ERK;PI3K激活AKT和mTORC1;TGFBR2磷酸化PAR6,募集SMURF1在紧密连接处降解RhoA。这些都要画成从受体复合物出发的独立箭头,而不是从SMAD出发。
潜伏型TGF-β的激活
这是通路在细胞外的那一半。成熟二聚体仍被自身的前结构域LAP包裹,构成小潜伏复合物;通过二硫键与LAP相连的LTBP-1再把它系在基质中的原纤维蛋白和纤连蛋白上。上皮细胞上的整合素αvβ6和αvβ8结合TGF-β1和TGF-β3的LAP上的RGD基序(TGF-β2没有);αvβ6通过牵拉被锚定的LTBP释放出细胞因子。在调节性T细胞和血小板上,由GARP代替LTBP,把潜伏型TGF-β1固定在细胞表面。遗传学也归在这里:马方综合征的原纤维蛋白-1突变,以及Loeys–Dietz综合征的TGFBR1、TGFBR2、SMAD2、SMAD3、TGFB2、TGFB3突变,两者都会导致主动脉瘤。
TGF-β与上皮-间质转化
一步步画出上皮细胞转变为间质细胞的过程。SMAD3–SMAD4与搭档因子一起诱导EMT转录因子SNAIL、SLUG(SNAI2)、ZEB1/ZEB2和TWIST;它们抑制E-钙黏蛋白(CDH1),同时N-钙黏蛋白、波形蛋白和纤连蛋白增加;细胞失去紧密连接和顶-底极性,获得迁移能力。在肿瘤相关的图中,要把它画成包含部分、混合状态的连续谱,而不是单一开关。
从抑癌因子到促癌因子
两个阶段,两个面板。在早期的上皮细胞中,SMAD复合物诱导p15INK4B和p21,抑制MYC和ID基因,细胞停滞在G1期。在晚期癌中,抑制增殖的分支已经丧失(多数微卫星不稳定结直肠癌带有TGFBR2移码突变,约半数胰腺癌缺失SMAD4),肿瘤和间质则利用TGF-β进行上皮-间质转化、侵袭、血管新生和免疫逃逸。乳腺癌骨转移是现成的例子:骨中释放的TGF-β诱导肿瘤细胞产生PTHrP,PTHrP驱动破骨细胞,被吸收的骨又释放出更多TGF-β。
T细胞分化中的TGF-β
把TGF-β当作免疫细胞因子来画。它与IL-2一起使初始CD4⁺ T细胞分化为FOXP3⁺调节性T细胞;与IL-6或IL-21一起分化为表达RORγt的Th17细胞;与IL-4一起分化为Th9细胞。它还抑制效应T细胞和NK细胞,在肿瘤中把T细胞挡在肿瘤核心之外,这正是TGF-β阻断与PD-1或PD-L1抗体联用的依据。缺乏TGF-β1的小鼠会在几周内死于广泛炎症。
TGF-β抑制剂的作用位置
每一类画在各自的层面。配体:fresolimumab,一种中和全部三种TGF-β亚型的抗体;bintrafusp alfa,把TGFBR2胞外结构域融合到PD-L1抗体上作为配体陷阱,已在III期试验中失败。受体激酶:galunisertib和vactosertib抑制ALK5。旁边放上内源性刹车:受体处的SMAD7、SMAD复合物上的SKI和SnoN,以及基质中的核心蛋白聚糖(decorin)。目前没有药物以TGF-β适应证获批;同一大家族中已获批的罗特西普和索特西普是激活素受体配体陷阱,结合的是激活素和GDF,而不是TGF-β。
什么是TGF-β信号通路?
TGF-β信号通路把转化生长因子β的信号从细胞表面传到细胞核:TGF-β结合II型受体(TGFBR2),TGFBR2磷酸化I型受体ALK5(TGFBR1),ALK5再磷酸化SMAD2和SMAD3,它们与SMAD4结合后进入细胞核,调控靶基因。靶基因之一SMAD7又会反过来抑制受体。
要点
- TGF-β以潜伏形式合成。弗林蛋白酶切开前体,但潜伏相关肽(LAP)仍包裹着成熟二聚体,LTBP再把它锚定在细胞外基质中;αvβ6、αvβ8等整合素、蛋白酶、血小板反应蛋白-1和酸性环境可释放出活性细胞因子。
- 两种受体都是丝氨酸/苏氨酸激酶。TGF-β先结合TGFBR2;TGFBR2招募TGFBR1(ALK5)并磷酸化其富含甘氨酸和丝氨酸的GS结构域,活性复合物含两个II型受体和两个I型受体。
- SMAD2和SMAD3是R-SMAD,SMAD4是唯一的Co-SMAD。接头蛋白SARA把SMAD2/3递给ALK5,ALK5磷酸化其C端的两个丝氨酸;磷酸化的R-SMAD随后与SMAD4形成复合物进入细胞核。
- 这条通路会自我关闭。SMAD2/3–SMAD4复合物诱导SMAD7表达,SMAD7与SMAD2/3竞争结合ALK5,并把泛素连接酶SMURF1、SMURF2和NEDD4L带到受体上,使受体被降解。
- 同一信号抑制早期肿瘤、却促进晚期肿瘤。在正常细胞和癌前细胞中,TGF-β诱导p15和p21、抑制MYC,使细胞周期停滞;在晚期癌中,它推动上皮-间质转化、侵袭和转移。
TGF-β信号通路的组成及作用
带标注的TGF-β通路图通常要画出的分子,按信号经过的先后排列。除非你要求更精简的标注,这就是默认的标注集。
| 组成 | 作用 | 画在哪里 |
|---|---|---|
| 潜伏型TGF-β复合物(LAP、LTBP) | 让成熟TGF-β保持无活性,并储存在细胞外基质中 | 顶部,细胞外 |
| 激活因子(整合素αvβ6、αvβ8,蛋白酶) | 把活性TGF-β二聚体从LAP中释放出来 | 潜伏复合物旁边 |
| TGF-β二聚体 | 活性配体:TGF-β1、TGF-β2或TGF-β3 | 细胞膜上方,与受体结合 |
| II型受体(TGFBR2) | 先与TGF-β结合并磷酸化I型受体的激酶 | 贯穿细胞膜 |
| I型受体(ALK5,TGFBR1) | GS结构域被磷酸化后激活的激酶,磷酸化SMAD2和SMAD3 | 在TGFBR2旁贯穿细胞膜,标一个圆圈P |
| SARA | 把SMAD2/3递给ALK5的接头蛋白 | 紧贴膜下、ALK5旁边(严格说在早期内体上) |
| SMAD2和SMAD3(R-SMAD) | 被ALK5在C端两个丝氨酸上磷酸化后脱离 | 细胞质中,各标一个圆圈P |
| SMAD4(Co-SMAD) | 共同搭档,形成SMAD2/3–SMAD4复合物 | 细胞质中,正与R-SMAD结合 |
| 搭档转录因子 | SP1、FOXO等DNA结合搭档和p300等共激活因子,决定调控哪些基因 | 细胞核内的DNA上 |
| 靶基因 | PAI-1(SERPINE1)、p15(CDKN2B)、p21(CDKN1A)、胶原(COL1A2)、JUNB和SMAD7被启动,MYC被关闭 | 细胞核内,图的最底部 |
| SMAD7与SMURF1/2 | 抑制性SMAD,阻断ALK5并使其降解 | 从细胞核回到ALK5的平头线 |
要画多详细,取决于课程层次。入门画TGF-β、两种受体、SMAD2/3、SMAD4和靶基因;细胞生物学课程加上SARA、SMAD7和SMURF;进阶课程再加潜伏复合物和非SMAD分支(TAK1到p38和JNK,PI3K到AKT)。许多教材把SMAD磷酸化画在细胞膜处,而Reactome把它放在受体内吞后的早期内体上。
TGF-β信号通路和BMP信号通路有什么区别?
TGF-β通路和BMP通路用的是同一套机制(II型受体磷酸化I型受体,再由R-SMAD和SMAD4传递信号),但TGF-β经由ALK5和SMAD2/3,BMP则经由ALK2、ALK3或ALK6和SMAD1/5/8。两者都属于TGF-β家族,人类共有33个成员。
| TGF-β分支 | BMP分支 | |
|---|---|---|
| 配体 | TGF-β1、TGF-β2、TGF-β3(激活素和Nodal也用同样的SMAD) | BMP2、BMP4、BMP6、BMP7、GDF5等 |
| II型受体 | TGFBR2 | BMPR2、ACVR2A、ACVR2B |
| I型受体 | ALK5(TGFBR1) | ALK3(BMPR1A)、ALK6(BMPR1B)、ALK2(ACVR1);BMP9和BMP10用ALK1 |
| 结合顺序 | 先结合II型受体 | 可单独结合I型受体;两型受体同时存在时结合强得多 |
| R-SMAD | SMAD2、SMAD3 | SMAD1、SMAD5、SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| 锚定蛋白 | SARA | Endofin |
| DNA元件 | 主要是SMAD结合元件(CAGAC) | SMAD结合元件之外还有富含GC的元件 |
| 胞外调控 | LAP让TGF-β保持潜伏 | Noggin和Gremlin 1捕获BMP |
| 典型功能 | 抑制生长、细胞外基质、免疫调节、纤维化 | 骨和软骨形成;心脏、肾脏和血管发育 |
画图时让两个分支在受体以下只共用SMAD4。常见错误是把SMAD1/5/8画在ALK5下面,或把SMAD2/3画在BMP受体下面。高浓度TGF-β在血管内皮细胞中也能动用ALK1,但这是例外,不是教材的标准画法。
关于TGF-β信号通路的常见问题
带标注的TGF-β信号通路图应该包括哪些内容?
标准内容包括TGF-β、II型受体(TGFBR2)、被磷酸化的I型受体ALK5(TGFBR1)、标有圆圈P的SMAD2和SMAD3、SMAD4、进入细胞核的SMAD复合物、靶基因,以及回到受体的SMAD7。更完整的图还会加上潜伏复合物(LAP、LTBP)、SARA和SMURF泛素连接酶。
TGF-β/SMAD通路分哪几步?
分六步:活性TGF-β从潜伏复合物中释放;它结合TGFBR2;TGFBR2招募并磷酸化ALK5;ALK5磷酸化SMAD2和SMAD3;磷酸化的SMAD2/3与SMAD4结合;复合物进入细胞核,与搭档转录因子一起调控靶基因。随后产生的SMAD7再把受体压下去。
TGF-beta和TGF-β是一回事吗?
是的。TGF-beta、TGF-β和TGF-b都是转化生长因子β的写法。这个名称涵盖人类的三种亚型TGF-β1、TGF-β2和TGF-β3;Reactome等通路数据库画的是TGF-β1。
SMAD7有什么作用?
SMAD7是关闭TGF-β信号的抑制性SMAD:它结合激活的ALK5受体,阻止SMAD2/3停靠,并招募SMURF1、SMURF2或NEDD4L给受体加上泛素,使其降解。它还会带来磷酸酶PP1,去掉ALK5上的磷酸基团。由于SMAD2/3–SMAD4会启动SMAD7基因,这是一条负反馈环。
TGF-β的靶基因有哪些?
所有细胞类型共有的靶基因很少,负反馈调节因子SMAD7和SKIL(SnoN)是主要的例外。常见的、因细胞而异的靶基因包括PAI-1(SERPINE1)、CDK抑制因子p15(CDKN2B)和p21(CDKN1A)、I型胶原(COL1A2)、JUNB和SNAIL,而MYC被抑制。
为什么TGF-β既能抑癌又能促癌?
因为作用取决于细胞状态:在正常细胞和早期肿瘤中,TGF-β诱导p15和p21、抑制MYC,使细胞周期停滞;但失去了这条抑制增殖分支的晚期癌,会把剩下的信号用于上皮-间质转化、侵袭和转移。CDKN2B缺失或FOXO等SMAD搭档减弱,都是肿瘤完成这一转变的途径。
TGF-β是怎样引起纤维化的?
TGF-β信号过强时,成纤维细胞转变为肌成纤维细胞,产生胶原、纤连蛋白和PAI-1并表达α-平滑肌肌动蛋白,细胞外基质随之堆积。在小鼠中,敲除SMAD3或提高SMAD7水平都能防止实验性肺纤维化。
什么是非经典(非SMAD)TGF-β信号?
非经典信号是同一组受体启动的、不依赖SMAD的分支:TRAF蛋白激活TAK1,进而通向p38和JNK,另外还有激活ERK、PI3K–AKT、RHO GTP酶和NF-κB的途径。大多数图把它们画成从受体伸出的一条侧支。
资料来源
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
继续探索
我们的其他图表工具,以及相关的指南文章。