
インスリンシグナル伝達経路の図ジェネレーター
インスリン受容体からIRS-1、PI3K、Aktを経てGLUT4に至るインスリンシグナル伝達経路の図を、筋・肝臓・脂肪の版、インスリン抵抗性、グルカゴンとともに作ります。生理学や医学の教育で使われています。
インスリンシグナル伝達経路の図の例
GLUT4やMAPKの分岐まで描いたインスリン経路の全体図、ラベル8つの概要、インスリン抵抗性、空欄版。いずれも表示のプロンプトの実際の生成結果で、クリックで読み込み編集できます。
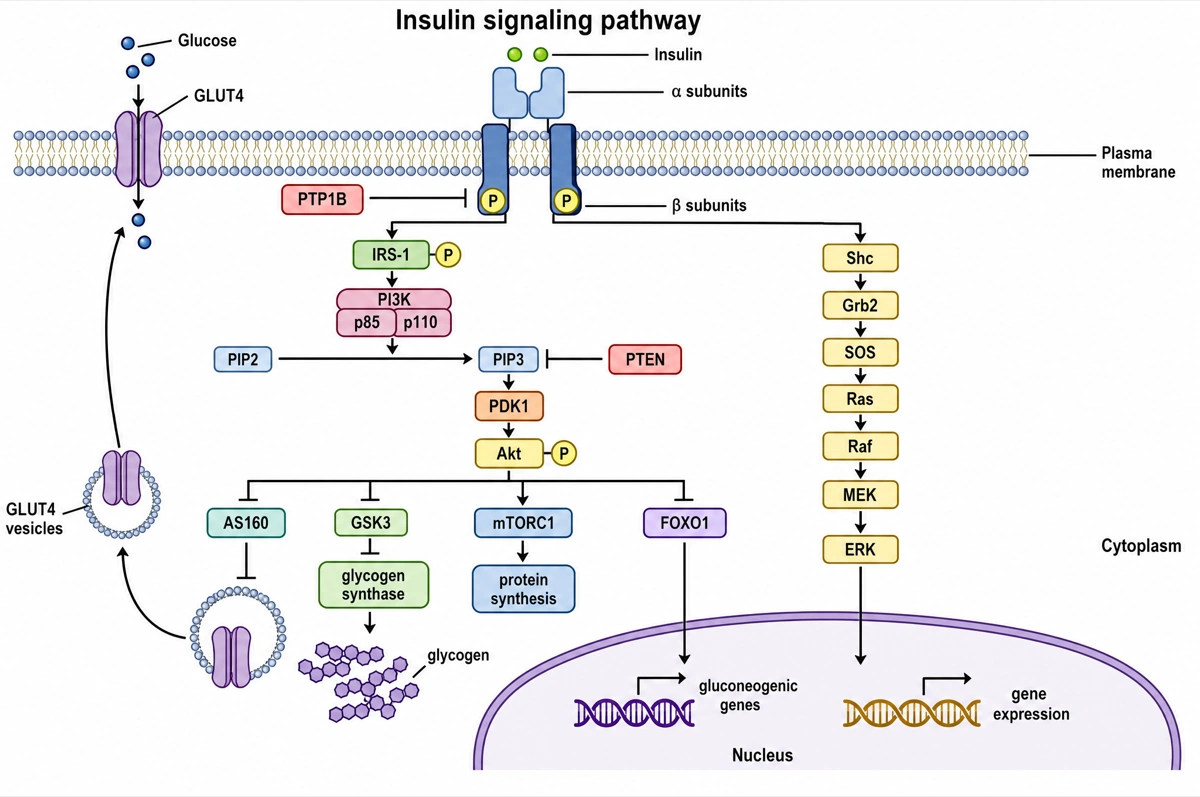
左に代謝、右に増殖
受容体から矢印に沿って下へ読みます。
- 1
インスリン → 受容体
α鎖に結合すると、β鎖どうしがリン酸化し合う
- 2
IRS-1 → PI3K → PIP3
PI3KがIRS-1に結合してPIP3をつくり、PTENが戻す
- 3
PDK1 → Akt → 4つの標的
GLUT4移行、グリコーゲン・タンパク質合成、糖新生抑制
- 4
Shc → Ras → ERK
右の枝が増殖のシグナルを遺伝子へ届ける
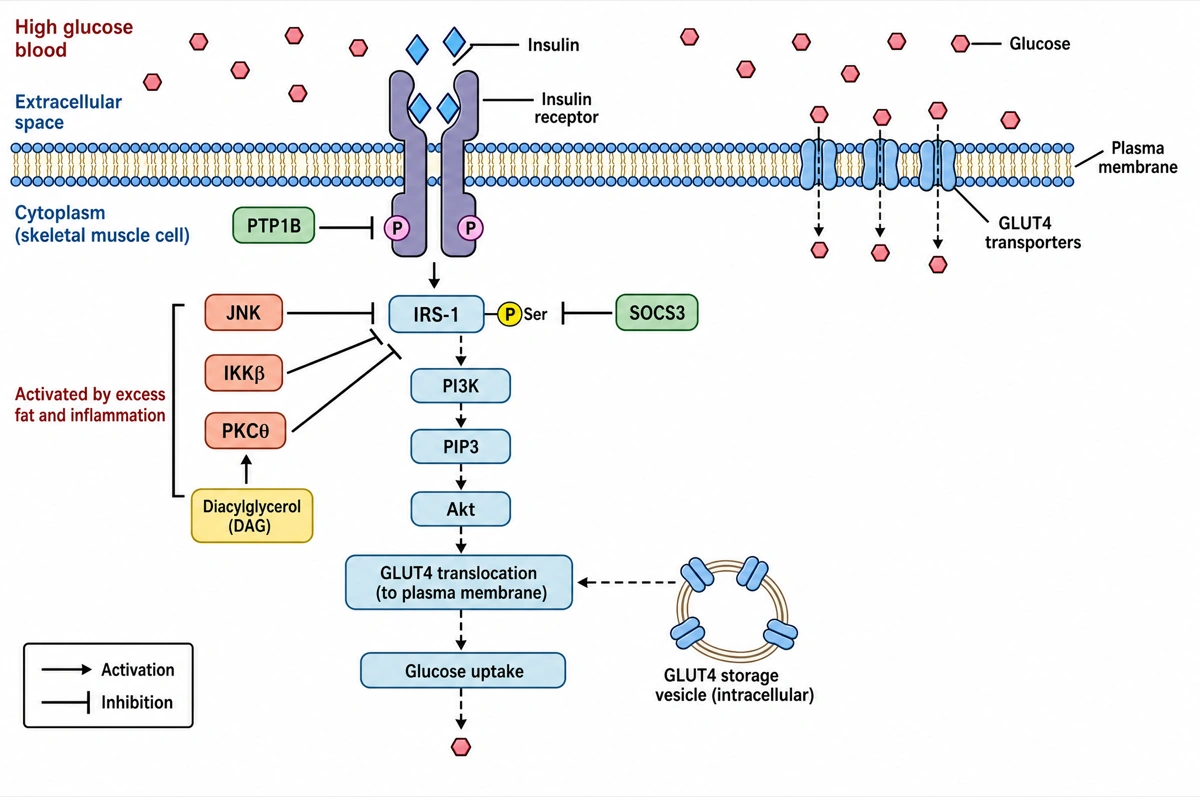
インスリン抵抗性はIRS-1から始まる
破線の矢印が、弱まったシグナルを表します。
- 1
JNK・IKKβ・PKCθ
脂肪と炎症で活性化(PKCθはDAG経由)、IRS-1を抑制
- 2
SOCS3とPTP1B
SOCS3はSerリン酸化IRS-1を、PTP1Bは受容体を抑える
- 3
破線 → GLUT4
PI3KとAktの活性化が弱く、膜に届くGLUT4が少ない
組織別・目的別のインスリンシグナル伝達経路の図
カスケードそのものはどの細胞でも同じで、図で示すべきなのはそれがどこで終わるかです。どの組織、どの問いのための図かを指定してください。
筋肉のインスリンシグナル伝達
経路はGLUT4で終わります。AktがAS160をリン酸化し、GLUT4小胞が細胞膜と融合してグルコースが入ります。2つ目の出力はグリコーゲン合成です。
肝臓のインスリンシグナル伝達
ここにGLUT4はありません。AktがGSK3を止めるのでグリコーゲン合成酵素は活性のまま保たれ、Aktにリン酸化されたFOXO1は核を出て、糖新生遺伝子を動かさなくなります。
脂肪細胞のインスリンシグナル伝達
筋肉と同じGLUT4の移行に、脂肪分解のブレーキが加わります。AktがPDE3Bを活性化するとcAMPが下がり、ホルモン感受性リパーゼがオフになります。
インスリン抵抗性の図
同じカスケードに障害を描き込みます。JNK、IKKβ、PKCによるIRS-1のセリンリン酸化、弱まったPI3KとAktのシグナル、細胞膜上で減ったGLUT4です。
インスリンとグルカゴンによる血糖調節
細胞内のカスケードではなく、その外側のループです。膵臓のβ細胞とα細胞、肝臓、筋肉、脂肪組織を描き、インスリンは血糖を下げ、グルカゴンは上げます。
インスリンシグナル伝達経路とは?
インスリンシグナル伝達経路とは、インスリンが受容体型チロシンキナーゼであるインスリン受容体に結合してIRSタンパク質をリン酸化し、PI3KとAktを活性化して、GLUT4を細胞表面へ運び、グリコーゲンとタンパク質の合成を進め、肝臓での糖の産生を抑える一連の反応です。Shc、Grb2、Ras、MAPKを通るもう一つの枝は、インスリンの増殖シグナルを伝えます。
要点
- インスリン受容体は、インスリンが結合する前から四量体です。細胞外の2つのα鎖がインスリンを結合し、膜を貫く2つのβ鎖がチロシンキナーゼをもちます。結合によって2つのキナーゼドメインが近づき、互いをリン酸化します。
- 足場の大半は受容体ではなくIRS上にあります。自己リン酸化した受容体はインスリン受容体基質(IRS)の多数のチロシンをリン酸化し、PI3Kの調節サブユニットp85がSH2ドメインでそこに結合します。
- Aktは主にほかのタンパク質を「止める」ことで働きます。AS160(TBC1D4)を不活性化してGLUT4小胞を解放し、GSK3を不活性化してグリコーゲン合成酵素を活性のまま保ち、FOXO1をリン酸化して核の外へ出し、糖新生の遺伝子を抑えます。
- GLUT4の移行は筋肉と脂肪組織の反応です。インスリンは骨格筋、脂肪組織、心筋でGLUT4を細胞膜へ移動させます。筋肉では収縮もAMPKを介して、インスリンなしで同じ移動を起こします。
- インスリン抵抗性はIRSから始まります。肥満や2型糖尿病では、JNK、IKKβ、PKCθなどのセリン/トレオニンキナーゼがIRS-1のセリンをリン酸化し、PI3KとAktへのシグナルを弱めるため、GLUT4の移行とグリコーゲン合成が減ります。
インスリンシグナル伝達経路の各段階とそのはたらき
ラベル付きのインスリンシグナル伝達経路の図にふつう描かれる分子を、順番、はたらき、次に作用する相手とともにまとめました。短いセットを指定しない限り、これが標準のラベルです。
| 分子 | はたらき | 次に作用する相手 |
|---|---|---|
| インスリン | 膵臓のβ細胞がつくるペプチドホルモン。血糖値が上がると分泌される | インスリン受容体のα鎖 |
| インスリン受容体(α2β2) | 受容体型チロシンキナーゼ。インスリンが結合するとβ鎖どうしがリン酸化し合う | IRS-1/2とShc(チロシンをリン酸化) |
| IRS-1とIRS-2 | 多数のリン酸化チロシンをもつ足場タンパク質 | PI3K(p85サブユニットを介して)とGrb2 |
| PI3K(p85/p110) | 細胞膜の内側でPIP2をPIP3に変える脂質キナーゼ | PIP3がPDK1とAktを呼び寄せる |
| PDK1 | AktのThr308をリン酸化する(Ser473はmTORC2) | Akt |
| Akt(プロテインキナーゼB) | 代謝の枝の中心にあるセリン/トレオニンキナーゼ | AS160、GSK3、FOXO1、TSC2とRhebを介してmTORC1 |
| AS160(TBC1D4) | GLUT4小胞を細胞内に留めるRab-GAP。Aktが止める | GLUT4小胞が細胞膜へ移動して融合する |
| GLUT4 | 骨格筋、心筋、脂肪細胞のグルコース輸送体 | グルコースが細胞内に入る |
| GSK3 | グリコーゲン合成酵素を不活性に保つキナーゼ。Aktが止める | グリコーゲン合成酵素が活性のまま → グリコーゲン |
| FOXO1 | 糖新生遺伝子の転写因子。Aktが核の外へ出す | PEPCKとグルコース-6-ホスファターゼが減り、肝臓からの糖の放出が減る |
| mTORC1 | Aktの下流で活性化される成長のキナーゼ複合体 | S6K1と4E-BP1 → タンパク質合成 |
| Shc → Grb2 → SOS → Ras → Raf → MEK → ERK | IRS-1に依存しない増殖の枝 | 遺伝子の転写と細胞の成長 |
教科書の図は筋肉と肝臓の枝を1つの細胞に描きますが、実際には別の組織で起こります。GLUT4の移行は筋肉と脂肪組織の反応で、FOXO1と糖新生の抑制は肝臓の反応です。入門書のなかには「肝細胞にはインスリン受容体がない」と書くものもありますが、肝臓はむしろ受容体密度が最も高い組織の一つで、欠けているのはインスリン依存性のグルコース取り込みのほうです。組織を指定すれば、その枝だけを描きます。
インスリンとグルカゴンのシグナル伝達の違い
インスリンは受容体型チロシンキナーゼとPI3K–Aktのカスケードでエネルギーを蓄えて血糖値を下げ、グルカゴンはGタンパク質共役型受容体、cAMP、プロテインキナーゼAで肝臓から糖を放出させて血糖値を上げます。同じ肝臓の酵素を逆向きに動かすため、2つは並べて描かれます。
| インスリン | グルカゴン | |
|---|---|---|
| つくる細胞 | ランゲルハンス島のβ細胞 | ランゲルハンス島のα細胞 |
| 分泌されるとき | 食後に血糖値が上がったとき | 血糖値が下がったとき、たんぱく質の多い食事のあと |
| 受容体 | インスリン受容体(受容体型チロシンキナーゼ、α2β2) | グルカゴン受容体(7回膜貫通型のGPCR、Gsと共役) |
| 最初の中継 | IRSのリン酸化 → PI3K → PIP3 | アデニル酸シクラーゼ → cAMP |
| 主なキナーゼ | Akt(プロテインキナーゼB) | プロテインキナーゼA |
| 主な標的組織 | 骨格筋、脂肪組織、肝臓 | 肝臓 |
| グリコーゲン | 合成が増える(GSK3がオフ、グリコーゲン合成酵素がオン) | 分解が増える(グリコーゲン分解) |
| 糖新生 | 抑えられる(FOXO1が核の外へ) | 促される(PKAがCREBをリン酸化) |
| 血糖値 | 下がる | 上がる |
2つは別々のカスケードとして描き、1本の経路にまとめないでください。インスリンの矢印はグリコーゲン合成と糖新生の抑制に、グルカゴンの矢印はグリコーゲン分解と糖新生の促進に行き着きます。グルカゴン受容体をチロシンキナーゼとして描いたり、インスリンがcAMPで働くように描いたりしていないかを、まず確認してください。
インスリンシグナル伝達経路についてよくある質問
インスリンシグナル伝達経路の流れは?
インスリンが受容体に結合し、受容体が自身とIRS-1をリン酸化し、IRS-1がPI3Kを呼び寄せ、PI3KがPIP3をつくり、PIP3がPDK1とAktを膜に集め、活性化したAktがGLUT4の移行、グリコーゲン合成、タンパク質合成を進め、糖新生を止めます。並行して、ShcとGrb2がSOSを呼び寄せ、RasとMAPKカスケードを活性化します。
ラベル付きのインスリンシグナル伝達経路の図には何を描くべき?
標準はインスリン、α鎖とβ鎖をもつインスリン受容体、IRS-1、PI3K、PIP2とPIP3、PDK1、Akt、AS160、GLUT4、GSK3、グリコーゲン合成酵素、FOXO1、mTORC1、それにShc–Grb2–SOS–Ras–MAPKの枝です。医学部向けの図では、負の調節因子PTP1BとPTENも加えます。ラベルを減らすよう指定すれば、その分だけを描きます。
インスリンはどうやってGLUT4を細胞膜へ運ぶ?
AktがAS160(TBC1D4)をリン酸化します。AS160はふだんGLUT4小胞を細胞内に留めているRab-GAPで、これが止まるとRabタンパク質がGTP結合型のまま保たれ、小胞は細胞膜へ移動して融合します。筋肉では収縮もAMPKを介して、インスリンなしで同じ移動を起こします。
インスリンはどうやってグリコーゲン合成を増やす?
AktがGSK3をリン酸化して不活性化します。GSK3はグリコーゲン合成酵素を止めているキナーゼなので、グリコーゲン合成酵素は活性のまま保たれます。さらにプロテインホスファターゼ1がグリコーゲン合成酵素を脱リン酸化し、グリコーゲンホスホリラーゼを不活性化するので、同時にグリコーゲンの分解も遅くなります。
インスリンはどうやって肝臓の糖の産生を止める?
Aktが転写因子FOXO1をリン酸化すると、FOXO1は核の外へ出て、糖新生酵素の遺伝子の発現が下がります。インスリンはPEPCK、フルクトース-1,6-ビスホスファターゼ、グルコース-6-ホスファターゼの発現を下げ、グルコキナーゼとピルビン酸キナーゼの発現を上げて、肝臓を糖の産生から貯蔵へ切り替えます。
インスリン抵抗性では経路のどこがうまくいかない?
シグナルは上流で途切れます。JNK、IKKβ、PKCなどのセリン/トレオニンキナーゼがIRS-1のセリンをリン酸化し、mTORのシグナルがIRS-1の分解を早め、PTP1BやPTENなどのホスファターゼの活性が高まるため、PI3KとAktの活性化が弱くなります。その結果、筋肉ではGLUT4の移行とグリコーゲン合成が減り、肝臓では糖新生が増えます。筋肉では脂肪由来のジアシルグリセロールがPKCθを、肝臓ではPKCεを活性化します。
インスリンシグナルを抑える因子は?
PTP1Bがインスリン受容体を脱リン酸化し、PTENがPIP3をPIP2に戻し、SOCSタンパク質がシグナル複合体に結合してIRS-1をふさぎ、IRS-1のセリンのリン酸化がシグナルを根元で止めます。そのセリンキナーゼの一つがmTORC1の下流にあるS6K1で、経路に組み込まれた負のフィードバックになっています。
インスリンシグナル伝達経路とPI3K/Akt経路の違いは?
PI3K/Akt経路は多くの増殖因子が使う汎用のモジュールで、インスリンシグナル伝達経路はインスリン受容体とIRSタンパク質を通ってそこに入る一つのルートです。出力は主に代謝、つまりGLUT4、グリコーゲン、糖新生として読み取られます。細胞生物学やがん研究で描かれる汎用モジュール(TSC2、mTORC1、BAD、MDM2を含む)には、PI3K/Akt経路の図ジェネレーターを使ってください。
出典
- Insulin signaling pathway (hsa04910) — KEGG PATHWAY
- Translocation of SLC2A4 (GLUT4) to the plasma membrane — Reactome
- Insulin resistance (hsa04931) — KEGG PATHWAY
- Biochemistry, Insulin Metabolic Effects — StatPearls — NCBI Bookshelf
関連ツールと記事
ほかの図表作成ツールと、その読み方をまとめた記事。
