
TGF-βシグナル伝達経路の図ジェネレーター
潜在型TGF-βの活性化、II型受容体とALK5、SMAD2/3とSMAD4、SMAD7のフィードバックに、SMAD非依存経路、EMT、創薬標的を加えたTGF-βシグナル伝達経路の図を描きます。線維化とがんの研究向けに作りました。
TGF-βシグナル伝達経路の図の例
TGF-β経路の4つのプロンプトから実際に生成した図です。SMAD7のフィードバック入りの全ラベル版、6ラベルの全体図、線維化、空欄の穴埋め版。クリックでプロンプトを読み込み、編集できます。
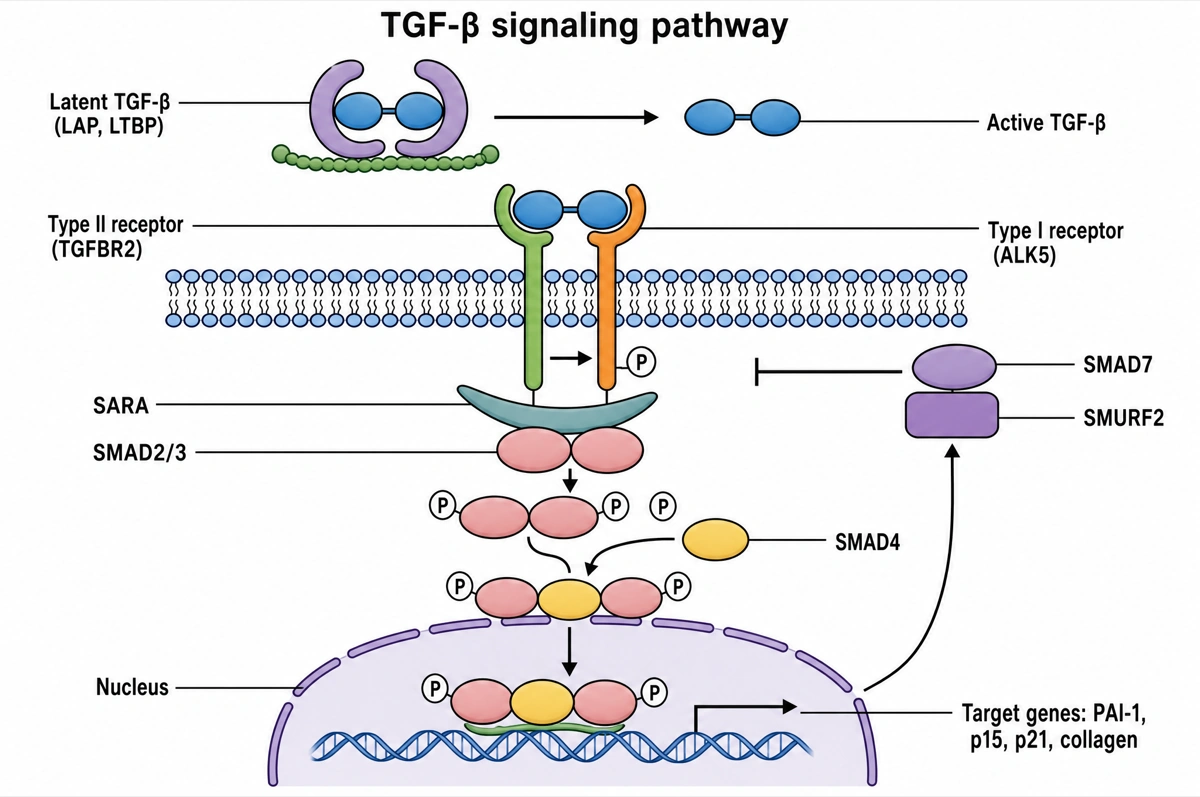
2つのキナーゼとSMAD、そしてブレーキ
上から下へ読み、右側を上がってフィードバックへ。
- 1
潜在型 → 活性型TGF-β
細胞外でLAP・LTBPから活性型TGF-βが放出される。
- 2
TGFBR2 → ALK5
TGF-βがTGFBR2に結合し、I型受容体ALK5をリン酸化。
- 3
SARA・SMAD2/3・SMAD4
ALK5がSMAD2/3をリン酸化し、SMAD4とともに核へ。
- 4
標的遺伝子とSMAD7
PAI-1・p21・コラーゲンが発現、SMAD7がALK5を阻害。
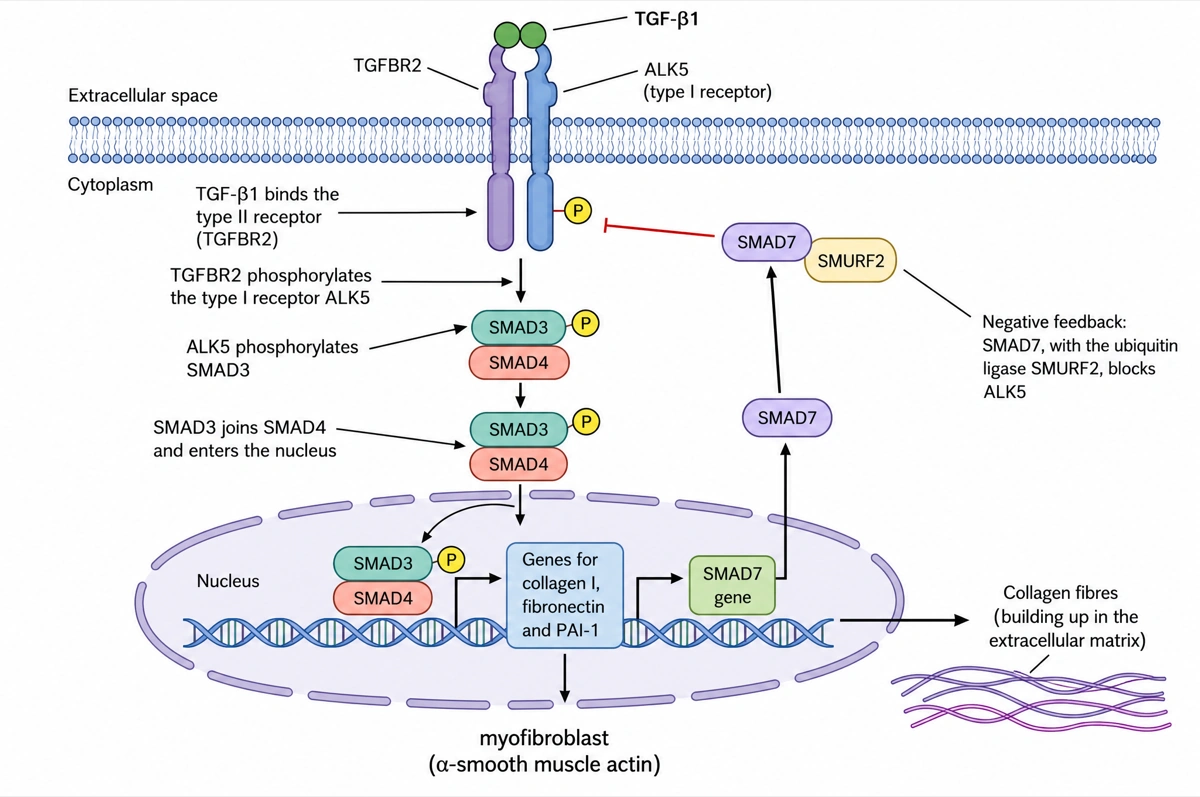
線維化を促すTGF-β1、抑えるSMAD7
中央を下へ読み、右のSMAD7の流れを上へ。
- 1
TGFBR2 → ALK5 → SMAD3
2つの受容体を経て、SMAD3とSMAD4が核に入る。
- 2
遺伝子 → 筋線維芽細胞
I型コラーゲン・フィブロネクチン・PAI-1が発現。
- 3
SMAD7のフィードバック
SMAD7も誘導され、SMURF2とともにALK5を阻害。
SMADの中心経路の先まで描くTGF-βの図
上の図は古典的なSMAD2/3経路とその線維化のプログラムを描き、下の表はSMAD1/5/8を使うBMPの枝を扱っています。細胞生物学、腫瘍学、免疫学の論文が描くほかのTGF-βの図は次のとおりです。
古典的・非古典的TGF-βシグナル
SMADの枝を中央に、受容体から出る枝をその横に描きます。受容体に結合したTRAF6がTAK1を活性化し、MKK3/6を経てp38へ、MKK4を経てJNKへつながります。ALK5はShcAをリン酸化してGrb2–SOSを呼び込み、Ras–ERKを活性化します。PI3KはAKTとmTORC1を活性化します。TGFBR2はPAR6をリン酸化してSMURF1を呼び込み、タイトジャンクションのRhoAを分解させます。これらはSMADからではなく、受容体複合体から出る別々の矢印として描きます。
潜在型TGF-βの活性化
経路の細胞外の半分です。成熟二量体はプロドメインのLAPに包まれたまま(小型潜在型複合体)で、LAPとジスルフィド結合したLTBP-1がそれをマトリックスのフィブリリンとフィブロネクチンにつなぎとめます。上皮細胞のインテグリンαvβ6とαvβ8は、TGF-β1とTGF-β3のLAPにあるRGDモチーフに結合します(TGF-β2にはありません)。αvβ6は、固定されたLTBPに逆らって引っぱることでサイトカインを放出させます。制御性T細胞と血小板では、LTBPの代わりにGARPが潜在型TGF-β1を細胞表面に保持します。遺伝学もここに収まります。マルファン症候群のフィブリリン1の変異と、ロイス・ディーツ症候群のTGFBR1、TGFBR2、SMAD2、SMAD3、TGFB2、TGFB3の変異で、どちらも大動脈瘤を伴います。
TGF-βと上皮間葉転換
上皮細胞が間葉系の細胞に変わっていく過程を段階ごとに描きます。SMAD3–SMAD4はパートナー因子とともにEMT転写因子のSNAIL、SLUG(SNAI2)、ZEB1/ZEB2、TWISTを誘導し、これらがEカドヘリン(CDH1)を抑える一方で、Nカドヘリン、ビメンチン、フィブロネクチンが増えます。細胞はタイトジャンクションと頂端–基底極性を失い、運動性を獲得します。がんの図では、1つのスイッチではなく、部分的なハイブリッド状態を含むスペクトラムとして描きます。
がん抑制因子からがん促進因子へ
2つの段階を2つのパネルで描きます。初期の上皮細胞では、SMAD複合体がp15INK4Bとp21を誘導し、MYCとID遺伝子を抑えるので、細胞はG1期で止まります。進行したがんでは細胞増殖抑制の枝が失われ(マイクロサテライト不安定性大腸がんの大半でTGFBR2のフレームシフト変異、膵がんの約半数でSMAD4の欠失)、腫瘍と間質はTGF-βを上皮間葉転換、浸潤、血管新生、免疫回避に使います。乳がんの骨転移が具体例です。骨から放出されたTGF-βが腫瘍細胞にPTHrPを誘導し、PTHrPが破骨細胞を動かし、吸収される骨がさらにTGF-βを放出します。
T細胞分化におけるTGF-β
免疫のサイトカインとしてのTGF-βです。IL-2とともにナイーブCD4⁺T細胞をFOXP3⁺制御性T細胞へ、IL-6またはIL-21とともにRORγtを発現するTh17細胞へ、IL-4とともにTh9細胞へ分化させます。エフェクターT細胞とNK細胞も抑え、腫瘍ではT細胞を腫瘍の中心部から締め出します。これがTGF-β阻害とPD-1抗体またはPD-L1抗体を併用する根拠です。TGF-β1を欠くマウスは、全身の炎症で数週間のうちに死にます。
TGF-β阻害薬の作用部位
クラスごとに、それぞれの階層に描きます。リガンド:3つのアイソフォームすべてを中和する抗体fresolimumabと、TGFBR2の細胞外ドメインをリガンドトラップとしてPD-L1抗体に融合したbintrafusp alfaで、後者は第3相試験で失敗しました。受容体キナーゼ:galunisertibとvactosertibがALK5を阻害します。その横に内因性のブレーキを置きます。受容体のSMAD7、SMAD複合体のSKIとSnoN、マトリックスのデコリンです。TGF-βの適応で承認された薬はまだありません。同じファミリーに作用する承認薬ルスパテルセプトとソタテルセプトは、アクチビン受容体を使ったリガンドトラップで、TGF-βではなくアクチビンやGDFに結合します。
TGF-βシグナル伝達経路とは?
TGF-βシグナル伝達経路は、トランスフォーミング増殖因子βのシグナルを細胞表面から核へ伝える経路で、TGF-βがII型受容体(TGFBR2)に結合し、TGFBR2がI型受容体ALK5(TGFBR1)をリン酸化し、ALK5にリン酸化されたSMAD2とSMAD3がSMAD4と複合体をつくって核に入り、標的遺伝子を調節します。標的遺伝子の一つであるSMAD7が、受容体をふたたび抑えます。
要点
- TGF-βは潜在型としてつくられます。フューリンが前駆体を切断しますが、潜在関連ペプチド(LAP)が成熟二量体を包んだまま残り、LTBPが細胞外マトリックスにつなぎとめます。αvβ6やαvβ8などのインテグリン、プロテアーゼ、トロンボスポンジン-1、酸性環境が活性型サイトカインを放出させます。
- 2つの受容体はどちらもセリン/スレオニンキナーゼです。TGF-βはまずTGFBR2に結合し、TGFBR2がTGFBR1(ALK5)を呼び込んでグリシンとセリンに富むGSドメインをリン酸化します。活性型の複合体はII型とI型の受容体を2つずつ含みます。
- SMAD2とSMAD3がR-SMAD、SMAD4が唯一のCo-SMADです。アダプターのSARAがSMAD2/3をALK5に差し出し、ALK5がC末端の2つのセリンをリン酸化します。リン酸化されたR-SMADはSMAD4と複合体をつくって核へ移行します。
- 経路は自らを停止させます。SMAD2/3–SMAD4複合体がSMAD7を誘導し、SMAD7はALK5をめぐってSMAD2/3と競合するとともに、ユビキチンリガーゼのSMURF1、SMURF2、NEDD4Lを受容体に連れてきて分解させます。
- 同じシグナルが初期のがんを抑え、進行したがんを後押しします。正常細胞や前がん細胞ではp15とp21を誘導しMYCを抑えて細胞周期を止めますが、進行したがんでは上皮間葉転換、浸潤、転移を促します。
TGF-βシグナル伝達経路の構成要素とはたらき
ラベル付きのTGF-β経路の図にふつう描かれる分子を、シグナルが通る順に並べました。短いラベルセットを指定しない限り、これが標準のラベルセットです。
| 構成要素 | はたらき | 描く位置 |
|---|---|---|
| 潜在型TGF-β複合体(LAP、LTBP) | 成熟TGF-βを不活性に保ち、細胞外マトリックスに蓄える | 上部の細胞外 |
| 活性化因子(インテグリンαvβ6・αvβ8、プロテアーゼ) | LAPから活性型TGF-β二量体を放出させる | 潜在型複合体のそば |
| TGF-β二量体 | 活性型リガンド。TGF-β1、TGF-β2、TGF-β3のいずれか | 膜の上、受容体に結合した状態 |
| II型受容体(TGFBR2) | 最初にTGF-βと結合し、I型受容体をリン酸化するキナーゼ | 膜を貫いて |
| I型受容体(ALK5、TGFBR1) | GSドメインのリン酸化で活性化されるキナーゼ。SMAD2とSMAD3をリン酸化する | TGFBR2の隣で膜を貫き、丸で囲んだPを付けて |
| SARA | SMAD2/3をALK5に差し出すアダプター | 膜のすぐ下、ALK5のそば(厳密には初期エンドソーム上) |
| SMAD2とSMAD3(R-SMAD) | ALK5によりC末端の2つのセリンをリン酸化され、離れていく | 細胞質、それぞれ丸で囲んだPを付けて |
| SMAD4(Co-SMAD) | SMAD2/3–SMAD4複合体をつくる共通のパートナー | 細胞質、R-SMADに加わるところ |
| パートナー転写因子 | SP1やFOXOなどのDNA結合パートナーと、p300などのコアクチベーター。調節する遺伝子を選ぶ | 核内のDNA上 |
| 標的遺伝子 | PAI-1(SERPINE1)、p15(CDKN2B)、p21(CDKN1A)、コラーゲン(COL1A2)、JUNB、SMAD7はオン、MYCはオフ | 核内、図のいちばん下 |
| SMAD7とSMURF1/2 | ALK5を阻害して分解に導く抑制型SMAD | 核からALK5へ戻る先端が平らな線 |
詳しさは授業のレベルによって違います。入門ではTGF-β、2つの受容体、SMAD2/3、SMAD4、標的遺伝子を描き、細胞生物学の講義ではSARA、SMAD7、SMURFが加わり、発展的な講義では潜在型複合体とSMAD非依存の枝(TAK1からp38とJNK、PI3KからAKT)も描きます。多くの教科書はSMADのリン酸化を細胞膜で描きますが、Reactomeは受容体が取り込まれたあとの初期エンドソームに置いています。
TGF-β経路とBMP経路の違いは?
TGF-β経路とBMP経路は、II型受容体がI型受容体をリン酸化し、R-SMADとSMAD4がシグナルを運ぶという同じしくみを使いますが、TGF-βはALK5とSMAD2/3を、BMPはALK2・ALK3・ALK6とSMAD1/5/8を使います。どちらもヒトで33のメンバーをもつTGF-βファミリーに属します。
| TGF-βの枝 | BMPの枝 | |
|---|---|---|
| リガンド | TGF-β1、TGF-β2、TGF-β3(アクチビンとNodalも同じSMADを使う) | BMP2、BMP4、BMP6、BMP7、GDF5など |
| II型受容体 | TGFBR2 | BMPR2、ACVR2A、ACVR2B |
| I型受容体 | ALK5(TGFBR1) | ALK3(BMPR1A)、ALK6(BMPR1B)、ALK2(ACVR1)。BMP9・BMP10にはALK1 |
| 結合の順序 | まずII型受容体に結合する | I型受容体だけにも結合できる。両方そろうと結合がずっと強くなる |
| R-SMAD | SMAD2、SMAD3 | SMAD1、SMAD5、SMAD8 |
| Co-SMAD | SMAD4 | SMAD4 |
| アンカータンパク質 | SARA | エンドフィン |
| DNA配列 | おもにSMAD結合配列(CAGAC) | SMAD結合配列に加えてGCに富む配列 |
| 細胞外での制御 | LAPがTGF-βを潜在型に保つ | NogginとGremlin 1がBMPを捕まえる |
| おもな役割 | 増殖停止、細胞外マトリックス、免疫調節、線維化 | 骨と軟骨の形成。心臓・腎臓・血管の発生 |
2つの枝は、受容体より下ではSMAD4だけを共有するように描きます。よくある誤りは、ALK5の下にSMAD1/5/8を、BMP受容体の下にSMAD2/3を描くことです。高濃度のTGF-βは血管内皮細胞でALK1も使いますが、これは例外で、教科書の標準的な描き方ではありません。
TGF-βシグナル伝達経路についてよくある質問
ラベル付きのTGF-βシグナル伝達経路の図には何を描けばよいですか?
標準的には、TGF-β、II型受容体(TGFBR2)、リン酸化されたI型受容体ALK5(TGFBR1)、丸で囲んだPを付けたSMAD2とSMAD3、SMAD4、核に入るSMAD複合体、標的遺伝子、受容体へ戻るSMAD7です。より詳しい図では、潜在型複合体(LAP、LTBP)、SARA、SMURFユビキチンリガーゼも加えます。
TGF-β/SMAD経路の段階を教えてください。
6段階です。活性型TGF-βが潜在型複合体から放出され、TGFBR2に結合し、TGFBR2がALK5を呼び込んでリン酸化し、ALK5がSMAD2とSMAD3をリン酸化し、リン酸化SMAD2/3がSMAD4と結合し、複合体が核に入ってパートナー転写因子とともに標的遺伝子を調節します。その結果つくられたSMAD7が、受容体をふたたび抑えます。
TGF-betaとTGF-βは同じものですか?
同じです。TGF-beta、TGF-β、TGF-bはいずれもトランスフォーミング増殖因子βの表記です。ヒトにはTGF-β1、TGF-β2、TGF-β3の3つのアイソフォームがあり、Reactomeなどの経路データベースはTGF-β1を描いています。
SMAD7は何をしますか?
SMAD7はTGF-βシグナルを止める抑制型SMADで、活性化したALK5受容体に結合してSMAD2/3の結合を妨げ、SMURF1、SMURF2、NEDD4Lを呼び込んで受容体をユビキチン化し分解させます。さらにホスファターゼPP1を連れてきてALK5のリン酸を外します。SMAD2/3–SMAD4がSMAD7遺伝子を活性化するので、これは負のフィードバックです。
TGF-βの標的遺伝子は何ですか?
すべての細胞に共通するものは少なく、フィードバック調節因子のSMAD7とSKIL(SnoN)がおもな例外です。細胞の種類によって変わる代表的な標的には、PAI-1(SERPINE1)、CDK阻害因子のp15(CDKN2B)とp21(CDKN1A)、I型コラーゲン(COL1A2)、JUNB、SNAILがあり、MYCは抑制されます。
TGF-βはなぜがん抑制因子にもがん促進因子にもなるのですか?
作用が細胞の状態によって変わるからです。正常細胞や初期のがんではp15とp21を誘導しMYCを抑えて細胞周期を止めますが、この細胞増殖抑制の枝を失った進行がんでは、残ったシグナルを上皮間葉転換、浸潤、転移に使います。CDKN2Bの欠失や、FOXOなどSMADのパートナーの弱まりが、この切り替えを起こす経路の一つです。
TGF-βはどのように線維化を起こしますか?
TGF-βシグナルが過剰になると、線維芽細胞が筋線維芽細胞に変わってコラーゲン、フィブロネクチン、PAI-1をつくりα平滑筋アクチンを発現し、細胞外マトリックスが蓄積します。マウスではSMAD3を欠損させたりSMAD7を増やしたりすると、実験的な肺線維症が防がれます。
非古典的(SMAD非依存)TGF-βシグナルとは何ですか?
非古典的シグナルは、同じ受容体が活性化するSMADを介さない枝の総称で、TRAFタンパク質がTAK1を活性化してp38とJNKへつながるほか、ERK、PI3K–AKT、RHO GTPase、NF-κBを活性化する経路があります。多くの図では受容体から出る1本の側枝として描きます。
出典
- Signaling by TGF-beta Receptor Complex — pathway R-HSA-170834 — Reactome
- TGF-beta signaling pathway — KEGG PATHWAY hsa04350 — KEGG
- TGFβ signalling in context (Massagué, 2012) — Nature Reviews Molecular Cell Biology
- TGF-β signaling in health, disease and therapeutics (Deng et al., 2024) — Signal Transduction and Targeted Therapy
関連ツールと記事
ほかの図表作成ツールと、その読み方をまとめた記事。
